Gen eucariota
Los genes eucariotas están constituidos por una región reguladora, que contiene las diversas secuencias consenso, secuencias que constituyen blancos específicos para la acción de diversas proteínas que se encargan de iniciar y regular la transcripción y definen a partir de qué punto comienza la transcripción, (transcripto primario).
A partir de ese punto comienza la región estructural. Todo lo que sigue, hasta el final del gen, se transcribe.
Ese ARN mensajero, que sale del núcleo, es recorrido en el citoplasma por los ribosomas y a partir de un triplete específico, AUG, que también codifica al aminoácido metionina, comienza la traducción, triplete por triplete, del polipéptido codificado por ese gen. Hasta que encuentra un triplete UAA, UAG o UGA que no significan ningún aminoácido y que se denominan codones stop pues allí finaliza la traducción.
· Secuencia conservada: cuando tiene la misma serie de nucleótidos en un segmento dado.
· Secuencia consenso: hay variación en la secuencia, pero ciertos nucleótidos están presentes en una frecuencia muy alta.
Variación genética
La variación depende de los alelos (producen variantes).
Los alelos ocupan un lugar en el cromosoma.
Existen dos tipos de variaciones:
· Continua
· Discontinua
Variación continua
Supone la existencia en la población de un espectro ininterrumpido de fenotipos.
No existe relación 1 x 1 entre el fenotipo y el genotipo. En la mayoría de los casos hay variación tanto de origen genético como ambiental.
En la vida diaria es más frecuente observar variación continua que discontinua.
Variación discontinua
En la variación discontinua un carácter aparece en la población en dos o más formas distintas y fácilmente separables llamadas fenotipos.
Hay relación 1 x 1 entre genotipo y fenotipo.
Existen 2 categorías:
· Polimorfismo
· Dimorfismo
Mostrando entradas con la etiqueta Genética. Mostrar todas las entradas
Mostrando entradas con la etiqueta Genética. Mostrar todas las entradas
jueves, 11 de julio de 2013

Genes y alelos. Mutaciones
Gen: Es un tramo funcional de la molécula de ADN, cuya función es la síntesis de un polipéptido (proteína completa o no, enzimática o estructural) o, en algunos casos, su función culmina en un tipo de ARN: ARN ribosomal (ARNr), ARN de transferencia (ARNt).
Ese segmento de ADN, constituye una unidad en el sentido funcional. Es decir, que ninguna fracción menor que lo componga podría cumplir la función que le corresponde.
La replicación semi-conservativa del ADN y los mecanismos de reparación, aseguran que esa información es copiada exactamente y transferida a cada una de las células que las reciben, durante los diversos procesos de división celular.
Sin embargo, de tanto en tanto, alguno de esos mecanismos “falla” y se produce un cambio en la secuencia de nucleótidos.
Este cambio, que denominaremos mutación origina una variante diferente de la información que allí estaba codificada.
En la medida que ésta nueva variante en la información se trasmita a una parte de la descendencia, así como se continúa trasmitiendo la forma original, estas dos formas constituyen dos alelos o alternativas de esa información genética.
Nos estamos refiriendo acá a un tipo de mutación a nivel “puntual” (existen otras de mayor magnitud que también han jugado en muchos casos un importante papel en la evolución).
Esas mutaciones puntuales pueden consistir en:
Ø la inserción de un nucleótido: Es la aparición de uno o más nucleótidos adicionales en una secuencia.
Ø la delección de un nucleótido: consiste en la pérdida de uno o más nucleótidos de una secuencia.
Ø la sustitución de un nucleótido: consiste en la aparición de un nucleótido en una posición de la secuencia ocupada originariamente por otro.
Las mutaciones de inserción y delección son más graves que las sustituciones porque todos los tripletes de bases estarán cambiados a partir del punto en el que se ha producido la mutación y por tanto el mensaje codificado será totalmente distinto.
Estas mutaciones pueden tener como consecuencia un cambio en el fenotipo pero no siempre. Si bien la palabra “alelos” se ha acuñado para el caso en que las consecuencias se observen fenotípicamente, el uso de éste término se ha extendido a cualquier caso en que se detecte (químicamente) una diferencia en la secuencia de nucleótidos aunque no genere diferencias fenotípicas.-
Aunque muchas mutaciones se generan al azar, las que ocurren sobre el ADN codificante tiene peores consecuencias.
Mutación en la región región estructural
Altera el ARN o la proteína sintetizados y da como resultado la expresión de una proteína no funcional o sea que afectarían la función de esa proteína en todo el organismo.
Mutación en la región reguladora
Podría afectar la producción de la proteína resultante sólo en una región determinada permitiendo una pequeña variación sin daño colateral.
Una mutación es cualquier cambio en la secuencia de nucleótidos del ADN. Puede implicar desde un pequeño evento como la alteración de un solo par de bases nucleotídicas hasta la ganancia o pérdida de cromosomas enteros.
Puede ser causada por:
· daños producidos por químicos.
· por radiación
· por errores durante la replicación y la reparación del ADN.
Una consecuencia de las mutaciones puede ser una enfermedad genética, sin embargo, aunque en el corto plazo puede aparecer como una algo perjudicial, a largo plazo las mutaciones son esenciales para nuestra existencia. Sin mutación no habría cambio y las especies no evolucionarían.
Clasificación de mutaciones:
· Génicas ó puntuales.
· Cromosómicas estructurales: afectan a la estructura del cromosoma.
· Numéricas:
i. Emploidía: perdida ó ganancia de un nº de cromosomas ó juegos:
a. Poliploidia: ganancia.
b. Haploidía: perdida.
ii. Aneuploidía: perdida o ganancia de cromosomas aislados.
ANEUPLOIDÍA
Son mutaciones que afectan al número de cromosomas de un individuo, pero
no a la serie completa de cromosomas, sino a cromosomas individuales, es decir que existen cromosomas de más o de menos. Se conocen como nulisomías si falta la pareja de cromosomas homólogos, monosomías, con un sólo cromosoma, trisomías con tres cromosomas homólogos, tetrasomías (cuatro cromosomas homólogos) y polisomías.
En el caso de la especie humana la aneuploidía más conocida es la trisomía
del cromosoma 21 que produce el Síndrome de Down. También se conoce, aunque es muy rara, la monosomía del cromosoma 23. Se denomina Síndrome de Turner y los individuos afectados presentan un único cromosoma X. (mujeres X0, con retraso en el crecimiento, infantilismo sexual y esterilidad). El Síndrome Klinefelter o trisomía del 23 XXX)
Genes: propiedades
· Dictan las propiedades inherentes a una especie
· El producto de los genes son las proteínas concretas.
· Variabilidad: se debe a variantes de un gen. Las variantes de un gen se les llama alelos.
La variación alélica es la responsable de la variación hereditaria dentro de la especie. A nivel de las proteínas la variación alélica se convierte en variación proteica.
Una variable del gen puede ser una mutación.
Naturaleza de los genes
Los genes están formados por ADN (bases nitrogenadas)
Funciones:
Ø Replicación (meiosis y mitosis)
Ø Generación de forma
Ø Mutación (por causa de la evolución)
Tecnología del ADN recombinante
El procedimiento consiste en extraer el ADN del organismo donante, cortarlo en fragmentos que contengan entre uno y varios genes e insertar esos fragmentos en un vector capaz de replicarse (por ejemplo un plásmido bacteriano o un fago) y de amplificar el fragmento incorporado en ella, dando lugar a un clon molecular del ADN insertado.
Las moléculas de vector y sus insertos se llaman ADN recombinante porque constituyen combinaciones nuevas de ADN.
Los vectores son esencialmente moléculas de ADN transportadoras.
Pasos que se realizan en la tecnología del ADN recombinante
Aislamiento del ADN
El primer paso es el aislamiento de los ADN donante y vector.
Digestión de ADN
Las técnicas de clonación de genes han llegado de la mano de las endonucleasas de restricción. Las enzimas de restricción se denominan según el organismo en el que se descubrieron, utilizando un sistema alfanumérico. La enzima EcoRI proviene de Escherichia coli.
Las endonucleasas de restricción (enzima) del tipo II cortan el ADN en regiones palindrómicas, que son las que tienen simetría binaria (que se lee igual de izquierda a derecha y viceversa.

Tras el corte, se generan fragmentos concretos con extremos cohesivos (pegajosos) apropiados para su inserción en un vector que haya sido cortado con la misma endonucleasa de restricción.
Ligación de ADN
Lo más común es que el ADN donante y el ADN vector se digieran con una enzima de restricción que genere extremos cohesivos y que se unan y formen moléculas recombinantes.
No obstante si esto no ocurre es posible sellar los extremos mediante la adición de la enzima ADN ligasa que crea enlaces fosfodiésteres en los puntos de unión. Algunas ligasas pueden ligar fragmentos de ADN con extremos romos. La enzima desoxinuclotidil transferasa se utiliza para crear colas complementarias mediante la adición de fragmentos de poli-dA y de poli-dT.
Amplificación del ADN recombinante
El ADN recombinante una vez ligado se introduce en una célula bacteriana mediante transformación. Dentro de la célula receptora el vector plasmídico se replica, ya que los plásmidos suelen tener un origen de replicación.
Construcción de una genoteca de ADN
El principal objetivo de la de la tecnología del ADN recombinante es la clonación de un gen particular o un fragmento genómico de interés para el investigador.
Se empieza con una muestra de ADN y el siguiente paso consiste en obtener una vasta colección de clones a partir de una muestra original. Esta colección de clones se llama genoteca.
Una genoteca es una colección de clones de ADN que representa todo el genoma de un organismo.
Tipos de genotecas:
Ø Según el vector que se utilice.
Ø Según el origen del ADN
Es posible separar los diferentes fragmentos producidos tras la digestión con una enzima de restricción porque migran en función de su tamaño cuando se someten a electroforesis en gel.
Se pueden detectar clones individuales de una genoteca utilizando sondas que reconozcan específicamente un ADN o su producto proteico o mediante transformación de un mutante nulo.
Existen dos tipos de sondas: las que reconocen ADN y las que reconocen proteínas.
Los sitios diana para las enzimas de restricción pueden situarse en un mapa y constituyen marcadores que son muy útiles para la manipulación del ADN.
Mapas de restricción: Un mapa de restricción es la recopilación del número, del orden y de la distancia entre los sitios de corte de enzimas de restricción en un segmento clonado de DNA.
La utilización de sondas permite detectar moléculas específicas de ADN o ARN mediante las técnicas de Southern y Northern.
Transferencia de Southern: Método utilizado para transferir fragmentos de ADN desde un gel de agarosa a un gel de nitrocelulosa con el propósito de hibridar ADN con ADN o ADN con ARN en el trabajo con ADN recombinante.
Edward Southern desarrolló la utilización de segmentos de DNA clonado, separados por electroforesis, transferidos a filtros, y rastreados con
sondas.
Además de para caracterizar DNA clonado, la transferencia de southern se utiliza para muchos otros fines:
Ø Proporciona una huella dactilar genética de gran valor en medicina forense.
Ø mapeo de sitios de restricción en un gen o cerca de él
Ø identificación de fragmentos de DNA que contienen un gen determinado de entre una mezcla de muchos fragmentos, y la identificación de genes relacionados en diferentes especies.
Huella genética: (también llamada pruebas de ADN o análisis de ADN) es una técnica utilizada para distinguir entre los individuos de una misma especie utilizando muestras de su ADN.
La huella genética se utiliza en la medicina forense para identificar a los sospechosos con muestras de sangre, cabello, saliva o semen.
También ha dado lugar a varias exoneraciones de condenados. Igualmente se utiliza en aplicaciones como la identificación de los restos humanos, pruebas de paternidad, la compatibilidad en la donación de órganos, el estudio de las poblaciones de animales silvestres, y el establecimiento del origen o la composición de alimentos.
Transferencia de northern: técnica de transferencia utilizada para el ARN.
Aplicaciones de la tecnología del DNA recombinante.
La ingeniería genética y la biotecnología están contribuyendo y contribuirán aún mucho más en el futuro a la medicina, la industria y la
agricultura, además de al campo de la investigación básica.
Aplicaciones en investigación y medicina. Es evidente que la producción de proteínas de utilidad médica como la somatostatina, la insulina, la hormona del crecimiento humana y los interferones, es de gran importancia práctica
Un avance especialmente interesante es el uso de maíz y soja transgénicos para producir anticuerpos monoclonales para uso médico. También puede ser posible utilizar plantas desarrolladas mediante ingeniería genética para producir vacunas orales.
Modelos animales de enfermedades genéticas humanas: ratones knockout.
Los ratones knockout están alterados genéticamente de manera que un gen concreto (un gen diana) se ha inactivado y se ha convertido en no funcional.
Terapia génica.
Los métodos de aislamiento y clonación de genes específicos desarrollados originalmente como una herramienta de investigación se están utilizando actualmente para tratar enfermedades genéticas mediante transferencia de alelos normales humanos en un proceso denominado terapia génica.
APLICACIONES EN ANIMALES Y PLANTAS.
Las técnicas de ingeniería genética se aplican a la agricultura y a la ganadería para obtener mayores cosechas y mejores alimentos con plantas y mayor cantidad y calidad en la cría de ganado, etc.
● Organismos transgénicos.
Se denomina organismos transgénicos a los animales y plantas que llevan en su genoma genes “extraños”, es decir, genes introducidos artificialmente y que no proceden de sus antepasados por herencia.
♦ Plantas transgénicas. Las aplicaciones agrícolas tienen como objetivo:
♦ Animales transgénicos.
Plantas transgénicas
Son aquellos que presentan en su ADN genes procedentes de otra especie.
En las plantas la transferencia genética ya se realizó en numerosas especies, lo que dio lugar a variedades que, gracias a los nuevos genes, presentan mejores caracteres que las plantas silvestres, como por ejemplo:
- producción de frutos más grandes, más sabrosos o más ricos en nutrientes; así se consiguió arroz con más vitamina A, maíz más rico en proteínas, tomates de mejor textura y firmeza, etc.
- mayor tolerancia a las condiciones adversas, como a las bajas temperaturas, a la sequía, a la salinidad, etc
- resistencia a ciertas plagas producidas por insectos, virus, etc. Muchas frutas y verduras son resistentes a las plagas de insectos gracias a la transferencia de genes bacterianos que dan lugar a la formación de moléculas que son tóxicas para los insectos, pero no para la planta ni para el hombre. Este logro permitió reducir la necesidad de fumigar los campos de cultivo con pesticidas.
- resistencia a los herbicidas, gracias a los genes transferidos, la planta a cultivar no es afectada por el herbicida, por lo que puede crecer mientras que se destruyen las malas hierbas. Se obtuvieron variedades de maíz, soja y algodón que son transgénicas y resistentes a los herbicidas.
- retraso en la maduración. Es el caso de muchas variedades de tomate.
Para introducir nuevos genes en una planta pueden emplearse diferentes procedimientos. Uno de ellos es el siguiente:
1º. De una bacteria se extrae un plásmido
2º. Mediante la técnica de recombinación de ADN, en el plásmido se inserta el gen que va ser transferido a la planta
3º. El plásmido recombinante obtenido se introduce, mediante diversos métodos, en células vegetales, provocando su incorporación en un cromosoma de la célula.
4º. A partir de cada célula transformada, se desarrollará una planta transgénica que presentará un nuevo carácter, consecuencia del gen que le fue transferido.
Animales transgénicos
Clonar un organismo significa hacer una copia exacta de él mismo.
El clon más famoso es la oveja Dolly nacida en Escocia en 1997. Dolly fue clonada por Ian Wilmut, Keith Campbell y sus colegas en el Instituto Roslin.
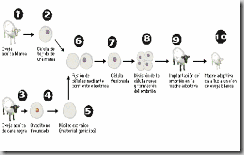
Krogh (2000) describe el procedimiento para obtener a Dolly de la siguiente manera:
1- De la oveja adulta que se quiere clonar (oveja A), se extrajeron células de una glándula mamaria.
2-. De otra oveja (oveja B), se aisló un óvulo no fecundado y a éste se le sacó el núcleo utilizando una micropipeta.
3-. Se fusionó una célula mamaria de la oveja A con el óvulo de la oveja B mediante una corriente eléctrica. En el óvulo se encuentran los factores que determinan la división repetida de esta célula hasta formar un embrión.
4-. El embrión se implantó en el útero de una tercera oveja (oveja C), donde completó su desarrollo, naciendo la oveja Dolly, genéticamente igual a la oveja A.
Cada célula de Dolly contiene el mismo ADN nuclear que el que tenía la célula de la glándula mamaria de la oveja donante. En la concepción de Dolly no hubo la fusión de un espermatozoide y un óvulo, como es común en la reproducción sexual, no hubo una mezcla de ADN nuclear.
martes, 10 de julio de 2012
Clonación
¿Qué es la clonación?
Hay que diferenciar el uso de la palabra clonación en distintos contextos de la biología:
Ø Si nos referimos al ámbito de la Ingeniería Genética, clonar es aislar y multiplicar en tubo de ensayo un determinado gen o, en general, un trozo de ADN. Sin embargo, Dolly no es producto de Ingeniería Genética.
Ø En el contexto a que nos referimos, clonar significa obtener uno o varios individuos a partir de una célula somática o de un núcleo de otro individuo, de modo que los individuos clonados son idénticos o casi idénticos al original.
En los animales superiores, la única forma de reproducción es la sexual, por la que dos células germinales o gametos (óvulo y espermatozoide) se unen, formando un zigoto (o huevo), que se desarrollará hasta dar el individuo adulto. La reproducción sexual fue un invento evolutivo (del que quedaron excluidas las bacterias y muchos organismos unicelulares), que garantiza que en cada generación de una especie van a aparecer nuevas combinaciones de genes en la descendencia, que posteriormente será sometida a la dura prueba de la selección y otros mecanismos evolutivos. Las células de un animal proceden en última instancia de la división repetida y diferenciación del zigoto.
Las células somáticas, que constituyen los tejidos del animal adulto, han recorrido un largo camino "sin retorno", de modo que, a diferencia de las células de las primeras fases del embrión, han perdido la capacidad de generar nuevos individuos y cada tipo se ha especializado en una función distinta (a pesar de que, salvo excepciones, contienen el mismo material genético).
El primer experimento de clonación en vertebrados fue el de Briggs y King (1952), en ranas. En los años 70, Gurdon logró colecciones de sapos de espuelas (Xenopus laevis) idénticos a base de insertar núcleos de células de fases larvarias tempranas en ovocitos (óvulos) a los que se había despojado de sus correspondientes núcleos. Pero el experimento fracasa si se usan como donadoras células de ranas adultas.
Desde hace unos años se vienen obteniendo mamíferos clónicos, pero sólo a partir de células embrionarias muy tempranas, debido a que aún no han entrado en diferenciación (y por lo tanto poseen la propiedad de pluripotencia). No es extraño pues el revuelo científico cuando el equipo de Ian Wilmut, del Instituto Roslin de Edimburgo comunicó que habían logrado una oveja por clonación a partir de una célula diferenciada de un adulto. Esencialmente el método (que aún presenta una alta tasa de fracasos) consiste en obtener un óvulo de oveja, eliminarle su núcleo, sustituirlo por un núcleo de célula de oveja adulta (en este caso, de las mamas), e implantarlo en una tercera oveja que sirve como “madre de alquiler” para llevar el embarazo. Así pues, Dolly carece de padre y es el producto de tres "madres": la donadora del óvulo contribuye con el citoplasma (que contiene, además mitocondrias que llevan un poco de material genético), la donadora del núcleo (que es la que aporta la inmensa mayoría del ADN), y la que parió, que genéticamente no aporta nada.
Científicamente se trata de un logro muy interesante, ya que demuestra que, al menos bajo determinadas circunstancias es posible "reprogramar" el material genético nuclear de una célula diferenciada (algo así como volver a poner a cero su reloj, de modo que se comporta como el de un zigoto). De este modo, este núcleo comienza a "dialogar" adecuadamente con el citoplasma del óvulo y desencadena todo el complejo proceso del desarrollo intrauterino.
Tipos de clonación
Clonación molecular
Este tipo de clonación es uno de los métodos más conocido. Se basa específicamente en extraer una parte del ADN y luego insertarlo en donde sea
conveniente (precisamente un plásmido o algo en donde sea posible la clonación). A través de la clonación se pueden obtener múltiples copias de un ser vivo, gracias a la acción de la DNA polimerasa. Podemos especificar el hecho de que la clonación sirve para ampliar fragmentos cuyo contenido son los genes (esenciales para el análisis del subsecuente).
Toda clonación debe seguir ciertos pasos para que ésta resulte efectiva
Primero, esta la fragmentación, en donde se retira un pedazo de ADN
relativamente importante para poder contar con los genes necesarios para la
clonación. Este proceso puede realizarse a través de la digestión con enzimas
de restricción.
Luego, encontramos la ligación, que es el proceso por donde se une el pedazo
de ADN con un vector generalmente circular para que así se forme una secuencia para ser incubado. Es importante contar con la enzima llamada ADN ligasa para que ésta logre unirlos de buena manera.
Tercero, la transfección. Aquí una vez unido el vector con el gen de interés se
transfecta a una célula, es decir se incorpora en una célula para que ésta obtenga la información necesaria para que se cumpla la clonación.
Para finalizar, encontramos la selección que es donde las células transfectadas se cultivan.
Clonación celular
Se destaca este tipo de clonación debido a que de una sola célula se puede formar una cierta población de esta misma. Este proceso destaca porque su uso es a partir de aros o cilindros de clonación en donde a partir del procedimiento in Vitro se cultivan los distintos tejidos. Se utiliza un agente mutagénico para proporcionar la selección de las colonias y para que éstas sean expuestas a la célula de la cual se desea clonar. Los aros o cilindros de clonación sirven para recolectar las células clonadas para que crezcan en un mejor ambiente de protección.
Clonación de organismos
Este tipo de clonación tiene una característica fundamental; es un tipo de reproducción asexual en donde se reproduce o se forma una copia de un organismo ya existente con la misma formación genética. Las amebas son un ejemplo de esto, ya que solo existe un progenitor y la fecundación no existe.
Los hongos también se reproducen asexuadamente.
Hoy en día, encontramos la posibilidad de obtener un gemelo idéntico naturalmente o artificialmente. La manera de hacer esto es alterando el desarrollo embrionario o realizando una separación voluntaria de los blastómeros, debilitando las uniones celulares.
Clonación de organismos de manera artificial
Podemos ver que en este tipo de clonación encontramos don tipos de células las cuales participan activamente en la clonación de manera artificial.
La primera de ellas es la que dona su material genético (ADN) y la segunda es
la que lo recibe, siendo ésta un ovocito que se encuentra en su meiosis II en el
citoplasma y a la cual se le han retirado sus cromosomas. Todo se basa en que
el citoplasma del ovocito receptor tenga las cualidades necesarias para reorientar el control genético de la célula donadora para poder crear el nuevo organismo. Al comenzar el proceso, mediante electrochoques se fusionan ambas células y estos mismos son los encargados de incitar al desarrollo de la nueva célula formada. Luego, esta es injertada en el útero de la hembra donde se le permite un ambiente apto para su crecimiento.
Un ejemplo de este tipo de clonación es el de la oveja Dolly. El año 1996 fue un
año de gran éxito científico debido a que se logró clonar una oveja. Para esto,
se utilizaron 277 ovocitos, de los cuales solo uno tuvo éxito, llamándola Dolly.
Lamentablemente, en Dolly se pudieron observar rasgos de envejecimiento rematuro, y murió a temprana edad. No se sabe bien la causa de esto, sin embargo se especula que al utilizar una célula del ADN de una célula adulta, la regeneración no es siempre la correcta y el clon nace con la edad correspondiente al organismo donante.

Ingeniería genética
Todo organismo, aún el más simple, contiene una enorme cantidad de información, que se repite en cada una de sus células, organizada en unidades llamadas genes, los cuales están formados por ADN. Los genes controlan todos los aspectos de la vida de cada organismo, incluyendo metabolismo, forma, desarrollo y reproducción.
De ellos depende la continuidad de la vida, porque constituyen el enlace esencial entre generaciones. Esta transmisión de información genética de los padres a los hijos se denomina herencia. Desde principios de siglo, la ciencia de la Ingeniería Genética ha experimentado notables avances.
Definición de Ingeniería Genética:
La Ingeniería Genética es una rama de la genética que se concentra en el estudio del ADN, pero con el fin su manipulación. Es decir; es la manipulación genética de organismos con un propósito predeterminado.
HISTORIA
· 1871: Se aísla el ADN en el núcleo de una célula.
· 1909: Las unidades fundamentales de la herencia biológica reciben el nombre de genes.
· 1927: Se descubre que los rayos X causan mutaciones genéticas.
· 1943: El ADN es identificado como la molécula genética.
· 1940-50: Se descubre que cada gen codifica una única proteína.
· 1953: Se propone la estructura en doble hélice del ADN.
· 1956: Son identificados 23 pares de cromosomas en las células del cuerpo humano.
· 1966: Se descifra el código genético completo del ADN.
· 1972: Se crea la primera molécula de ADN recombinante en el laboratorio.
· 1973: Tienen lugar los primeros experimentos de ingeniería genética en los que genes de una especie se introducen en organismos de otra especie y funcionan correctamente.
· 1975: La conferencia de Asilomar evalúa los riesgos biológicos de las tecnologías de ADN recombinante, y aprueba una moratoria de los experimentos con estas tecnologías.
· 1976: Se funda en EE.UU. Genentech, la primera empresa de ingeniería genética.
· 1977: Mediante técnicas de ingeniería genética se fabrica con éxito una hormona humana en una bacteria.
· 1978: Se clona el gen de la insulina humana.
· 1980: El Tribunal Supremo de los EE.UU. dictamina que se pueden patentar los microbios obtenidos mediante ingeniería genética.
· 1982: Se crea el primer ratón transgénico (el "superratón"), insertando el gen de la hormona del crecimiento de la rata en óvulos de ratona fecundados.
· 1982: Se produce insulina utilizando técnicas de ADN recombinante.
· 1983: Se inventa la técnica PCR, que permite replicar (copiar) genes específicos con gran rapidez.
· 1984: Creación de las primeras plantas transgénicas.
· 1985: Se inicia el empleo de interferones en el tratamiento de enfermedades víricas.
· 1986: Se autorizan las pruebas clínicas de la vacuna contra la hepatitis B obtenida mediante ingeniería genética.
· 1988: Primera patente de un organismo producido mediante ingeniería genética.
· 1990: Primer tratamiento con éxito mediante terapia génica en niños con trastornos inmunológicos ("niños burbuja"). Se ponen en marcha numerosos protocolos experimentales de terapia génica para intentar curar enfermedades cancerosas y metabólicas.
· 1995: Se completan las primeras secuencias completas de genomas de organismos: se trata de las bacterias Hemophilus influenzae y Mycoplasma genitalium.
· 1996: Por primera vez se completa la secuencia del genoma de un organismo eucariótico, la levadura cervecera "Saccharomyces cerevisiae". Por otra parte, el catálogo de genes humanos que Victor McKusick y sus colaboradores de la Universidad John Hopkins actualizan cada semana contiene ya más de cinco mil genes conocidos. El Proyecto Genoma, coordinado por HUGO (Human Genome Organization), avanza a buen ritmo.
· 1997: Clonación del primer mamífero, una oveja llamada "Dolly".
· 1998: Es secuenciado el nemátodo Caenorhabditis elegans
· 1999: Es secuenciado el cromosoma 22 humano
· 2000: Es secuenciada la mosca de la fruta D. melanogaster /26 de junio se presenta 90% borrador genoma humano
· 2001: Se completa el genoma humano.
· 2003: Cincuenta años después del descubrimiento de la estructura del ADN, se completa la secuencia del Genoma Humano.
· 2004: La ONU y el Gobierno de Chile organizan el Primer Foro Global de Biotecnología, en la Ciudad de Concepción, Chile.
TECNICAS UTILIZADAS EN LA INGENIERIA GENETICA
La Gel-Electroforesis:
El objetivo de esta técnica es, mediante un método bioquímico, basado en reacciones enzimáticas para poder analizar de forma rápida la variabilidad genética que se puede encontrar en una población determinada.
Este método consiste en obtener las enzimas del material que se desea conocer mediante el empapamiento en papel secante, introduciendo dichos papeles en el gel sometiéndolos a electroforesis para lograr la migración de las proteínas.
Marcadores: sondas y RFLPs:
Este método consiste en individualizar cada gen sobre la cadena de ADN en los cromosomas, identificando su rol en el concierto genético.
Los marcadores son segmentos reconocibles de ADN a lo largo de la cadena que permite estimar la localización relativa de otros genes.
Los marcadores se dividen en:
Las Sondas:
Representan una herramienta insoslayable de la ingeniería genética para el diagnóstico de huéspedes en el ADN celular y virósico, y son útiles en la investigación a fin de determinar con exactitud posiciones nucleótidas durante la síntesis de oligonucleótidos, en el laboratorio.
Los RFLPs (polimorfismos de longitud de los fragmentos de restricción) :
Comúnmente son llamados “rif-lips”: se dan cuando una determinada enzima de restricción es aplicada sobre el ADN ésta lo “corta” en lugares precisos y conocidos que dan como resultado sondas de largos específicos (luego, las diferencias en el tamaño obedecerán a alteraciones en la composición genética y, en muchos casos, son la evidencia de anormalidades).
Técnica ELISA ( Enzyme Linked Inmuno Sorbent Assay):
Esta técnica comúnmente reconoce los epitomes, es decir lo que son configuraciones espaciales de zonas de proteínas o ácidos nucleicos. Está especialmente indicada cuando se trata de virus o viroides, pues éstos se encuentran habitualmente asociados a proteínas de las cuales deben ser separados para permitir que los fragmentos de ácidos nucleicos (la secuencia usada como sonda y aquella a analizar) puedan unirse.
Amplificación del gen (Southern blot y PCR):
Se utiliza para la amplificación del gen (u obtención de numerosas copias de un fragmento específico del ADN).
En la amplificación se cuentan con dos procedimientos que son, los más usados:
Southern Blot:
En ella se comienza con la separación del ADN digerido por enzimas de restricción, los fragmentos resultantes se separan por tamaño mediante la gel-electroforesis y luego se transfieren a un filtro.
El ADN adherido se desnaturaliza y se lo hibrida exponiéndolo a sondas radiactivas, lo que permitirá, después del lavado del filtro de soporte, para eliminar el material que no se haya asociado a las sondas, se detecta por rayos X los fragmentos de interés para su purificación y duplicación en procedimientos de estudios o manipulación.
PCR:
La PCR (reacción en cadena de la polimerasa) esta técnica permite la amplificación de genes en grandes cantidades a partir de muy poco ADN y mecánicamente.
Este sistema implica la adición de un cebador corto (un oligonucleótido) en cada extremo de la secuencia elegida de ADN, separando las dos cadenas de la doble hélice por calentamiento y exponiéndolas a un ADN polimerasa (enzima que naturalmente replica y repara el ADN) bacteriano que reconoce a los cebadores dispuestos a cierta distancia entre sí en lados opuestos de la cadena y duplica el número de cadenas de ADN en la muestra.
Vectores:
Son las partes del ADN que se pueden autorreplicar con independencia del ADN de la célula huésped donde crecen.
Permiten obtener múltiples copias de un trozo específico de ADN, lo que proporciona una gran cantidad de material fiable con el que trabajar.
Tipos de vectores:
1. Los Plásmidos
2. Los Lambda
3. Los Cósmidos
ADN Recombinante:
Esta técnica reposa sobre la observación de la recombinación del ADN in-vivo durante la conjugación y la transformación en el mundo de las bacterias.
Dicha técnica está regida por las siguientes tres premisas que son fundamentales:
· La lectura precisa de la secuencia de nucleótidos del ADN (método de Maxam-Gilbert y de Sanger).
· El recorte del ADN con las enzimas de restricción en los lugares precisos y conocidos (endonucleasas) y el ligamiento de los restantes fragmentos de ADN con otras enzimas (ligasas).
· La localización de vectores de clonación.
Las secuencias de ADN recombinadas pueden ser obtenidas por diferentes medios:
· Por síntesis química.
· Por copia del ARN mensajero, ósea una enzima llamada transcriptasa inversa.
· Por aislamiento de un gen de un cromosoma (técnica de “shot gun”).
ADN Sintético:
En esta técnica las moléculas son llamadas oligonucleótidos sintéticos debido a que constituyen una fuente de segmentos uniformes de ADN o ARN. Su preparación depende de la capacidad de bloquear selectivamente el extremo 3´o el extremo 5´ de los nucleótidos; esto asegura que las reacciones de condensación que forman los enlaces azúcar-fosfato ocurran en la secuencia adecuada para unir los nucleótidos en el orden deseado.
ARN Contrasentido:
Esta técnica se da en la producción de dichos ARN contrasentido en plantas y animales implicando por lo común la reintroducción del gen deseado (o parte de él) en tal forma que la banda de ADN se transcriba produciendo así ARN contrasentido. Esto se logra normalmente cortando el promotor del gen y colocando un nuevo promotor en el extremo 3´ del mismo.
Biochips:
Son dispositivos miniaturizados en los que se pueden depositar decenas de miles de sondas de material genético, conocido en posiciones predeterminadas, constituyendo una matriz.
Los biochips permiten conocer las mutaciones genéticas en los pacientes. Para realizar su estudio ellos se ponen en contacto con el material genético marcado, obtenido de una muestra de un paciente o de un experimento lo que genera un patrón de señales en cuya lectura se realizara en un escáner y posteriormente será interpretado con un ordenador.
APLICACIONES DE LA INGENIERIA GENETICA
LA INGENIERÍA GENÉTICA Y LA TERAPIA DE ENFERMEDADES HUMANAS:
En los humanos hay numerosas enfermedades de caracteres hereditarios o relacionados con alteraciones genéticas. En la mayoría de los casos ni siquiera se han identificado los genes responsables y en muy pocos casos se dispone del mecanismo para incorporar el gen correcto a las células del individuo afectado.
Existen varias líneas de investigación que se basan en:
· Transferir un gen humano normal a una bacteria, obteniendo de ella la sustancia necesaria para luego inocularla en el enfermo.
· Transferir un gen correcto a las células de una persona: terapia de células somáticas.
· En el futuro, si el gen se hiciera llegar a un óvulo, un espermatozoide o el zigoto, todas las células del individuo tendrían el gen normal: Terapia de células germinales (no es legal).
Ejemplos en los que ya en la actualidad se emplean estas técnicas o están en fase de ensayo o investigación:
1) Sustancias humanas producidas por bacterias
Consiste en la producción de sustancias humanas por bacterias a las que se les ha introducido el gen correspondiente.
Entre las sustancias que ya se obtienen mediante esta técnica están:
· La insulina
· La hormona del crecimiento
· El interferón.
· El factor VIII
2) La ingeniería genética en humanos
Se basa en la introducción de un gen correcto en las células humanas para sustituir un gen deficiente. Algunos casos en los que esta técnica está en estudio o en proceso de ensayo son:
· La Talasemia: Es un grupo de enfermedades relacionadas con la presencia de hemoglobina distinta de la normal.
Su tratamiento requiere el retirar las células de la medula ósea, introduciendo en ellas el gen correcto mediante un virus, volviéndolas al torrente sanguíneo.
Existen varias dificultades para la selección de las células que producen la hemoglobina entre todas las células de la medula ósea. Debido a que los genes introducidos se expresan poco y también se debe porque las alteraciones en su manifestación son peligrosas.
· La carencia de la enzima Adenosin Desaminasa (ADA): Es un fallo en los leucocitos. Enfermedad de los niños burbuja o inmunodeficiencia combinada grave (SCID).
Su incidencia es rara su tratamiento requiere retirar las células de la medula ósea o linfocitos T, inyectando en ellas la enzima ADA combinada con polietilenoglicol ( PEG ) que permite en ciertos casos frenar los efectos de la enfermedad.
3) Enfermedades sometidas a ensayos clínicos de terapia génica
· Cáncer: melanoma, riñón, ovario, neuroblastoma, garganta, pulmón, cerebro, hígado, mama, colon, próstata, leucemia, linfoma...
· Fibrosis quística
· Hemofilia
· Artritis reumatoide
Tratamiento genético del cáncer
En el cáncer, no se trata de corregir un defecto genético, sino de utilizar la manipulación génica para dotar de una nueva propiedad a las células, que permite aprovecharlas en algún aspecto de la patología oncológica con fines terapéuticos.
En la actualidad, se han desarrollado distintas estrategias en terapia génica del cáncer, y se están realizando diversos ensayos clínicos para tratar diferentes tipos de cáncer: de mama, ovario, cabeza y cuello, pulmón, próstata, células renales, tumor cerebral, leucemia mieloide aguda, leucemia mieloide crónica, linfomas, melanoma, mieloma múltiple y neuroblastoma.
Las diferentes estrategias aplicadas en los ensayos clínicos realizados en terapia génica del cáncer son:
a. Aumentar la actividad antitumoral de células inmunes por medio de citoquinas (interleucinas, factores de necrosis tumoral, factores estimulantes de colonias o interferones).
b. Aumentar la inmunogenicidad del tumor introduciendo antígenos foráneos (“vacunas tumorales”).
c. Introducir un gen “suicida” o de sensibilidad aumentada a determinados fármacos. Se transduce el gen de una enzima (timidina cinasa) que activa selectivamente un profármaco (aciclovir).
d. Bloquear la expresión de oncogenes mediante terapia antisentido.
e. Introducir genes supresores de tumores (p53).
f. Eliminación de las células tumorales mediante adenovirus oncolíticos.
g. Transferencia de genes con efecto antiangiogénico, para inhibir la formación de vasos sanguíneos inducidos por el propio tumor.
h. Introducir genes de resistencia a fármacos para reducir la toxicidad de la quimioterapia, particularmente sobre la médula ósea.
Tratamiento etiopatógeno en fibrosis quística
El único tratamiento etiológico curativo posible radica en la terapia génica, es decir, transferir el gen normal por medio de vectores víricos o lipídicos a las células epiteliales del aparato respiratorio.
Los ensayos clínicos en humanos efectuados hasta el día de hoy no consiguen en general los efectos deseados.
Es precisa la administración frecuente y repetida de adenovirus lo que da lugar a la formación de anticuerpos específicos. En estos momentos la terapia génica no es una opción terapéutica para estos pacientes.
La Terapia génica en hemofilia
Lo que se hace en el caso de la hemofilia es que se administraría al enfermo el gen del factor de coagulación que le falta en lugar de darle el factor.
Lo primero fue lograr tomar un gen de una célula y colocarlo en una célula diferente.
La terapia génica en la hemofilia requiere que:
1. El gen que está siendo transferido debe ser colocado en las células donde tendrá un funcionamiento normal y efectivo.
2. Una vez transferido debe funcionar por un periodo prolongado de tiempo.
3. Estos transgenes deben tener una expresión adecuada (producir suficiente factor).
4. No debe afectar el ADN normal.
5. No debe producir reacción inmune.
6. Que el proceso sea consistente, fácil, y tener éxito en todas las personas.
Existen dos tipos de transferencia:
1. In vivo: La transferencia ocurre dentro del paciente. Tiene la ventaja de requerir menos manipulación de laboratorio.
2. Ex vivo: La transferencia de los genes ocurre fuera del paciente.
La transferencia in vivo requiere menos manipulación en el laboratorio y podría ser usada a gran escala.
La ex vivo requiere más trabajo “quirúrgico” y de laboratorio pero puede ofrecer más seguridad y control.
TRANSFERENCIA IN VIVO:
El ADN que lleva las instrucciones requiere de un vector, los vectores más comunes son los virus, porque son estructuralmente simples, pequeñas secciones de ADN, ARN y una pocas proteínas, son fáciles de estudias, pueden ser alterados genéticamente y tiene la tendencia natural a adherirse a tipos específicos de células y de transferirle su ADN.
Otros métodos que no usan vectores virales son como encapsular el ADN dentro de una capa lipídica para protegerlo de la descomposición hasta que pueda ser absorbido por la las células.
Otra propuesta es la unión del gen a una proteína. Para que el efecto dure el gen transferido debe permanecer estable y funcionando dentro de las células y las células mismas deben permanecer en función.
Algunos vectores pueden integrar su ADN. O sea que el ADN transferido se une físicamente con el ADN de la célula de la persona. Así el gen transferido será reproducido cada vez que el ADN de la célula sea reproducido. Una forma de hacer que el gen dure más es colocarlo en células estables y de larga duración como células hepáticas o musculares.
Terapia Génica
La terapia génica consiste en la aportación de un gen funcionante a las células que carecen de esta función, con el fin de corregir una alteración genética o enfermedad adquirida.

La terapia génica se divide en dos categorías:
· Alteración de células germinales (espermatozoides u óvulos): Es aquella dirigida a modificar la dotación genética de las células implicadas en la formación de óvulos y espermatozoides y, por tanto, transmisible a la descendencia. Este tipo de terapia génica sería la indicada para corregir de forma definitiva las enfermedades congénitas. Este tipo de terapias no ha sido practicado en humanos debido consideraciones de carácter ético.
· Terapia somática celular: Uno o más tejidos son sometidos a la adición de uno o más genes terapéuticos, mediante tratamiento directo o previa extirpación del tejido. Esta técnica se ha utilizado para el tratamiento de cánceres o enfermedades sanguíneas, hepáticas o pulmonares.
Algunas de las enfermedades susceptibles a la terapica génica:
Pero los alcances de la terapia génica no sólo se limitan a enfermedades genéticas, sino también a algunas de origen externo al organismo: virales, bacterianas, protozoicas, etc. Por ejemplo, un grupo de científicos estadounidenses empleó técnicas de terapia génica contra el virus del SIDA. Lo que se hizo fue que sintetizaron un gen capaz de detener la multiplicación del virus responsable de la inmunodeficiencia, y lo insertaron en células humanas infectadas.
El resultado fue exitoso: el virus detuvo su propagación e incluso aumentó la longevidad de ciertas células de defensa, las CD4.
Los criterios para seleccionar una enfermedad humana como candidata al tratamiento mediante terapia génica son:
– La enfermedad ha de amenazar gravemente la vida del paciente.
– Los órganos, tejidos y tipos celulares afectados por la enfermedad han de estar bien caracterizados.
– La versión normal del gen defectuoso debe haber sido aislada y clonada.
– El gen normal ha de poder ser introducido en una fracción significativa de células del tejido afectado, o bien la introducción del gen en un tejido accesible, como la médula ósea, puede beneficiar indirectamente el curso de la enfermedad en el tejido afectado.
– El gen debe poderse expresar adecuadamente, generando una cantidad suficiente de proteína normal.
Biotecnología
Las biotecnologías consisten en la utilización de bacterias, levaduras y células animales en cultivo para la fabricación de sustancias específicas. Permiten, gracias a la aplicación integrada de los conocimientos y técnicas de la bioquímica, la microbiología y la ingeniería química aprovechar en el plano tecnológico las propiedades de los microorganismos y los cultivos celulares. Permiten producir a partir de recursos renovables y disponibles en abundancia gran número de sustancias y compuestos.
Aplicadas a escala industrial, las tales biotecnologías constituyen la bioindustria, la cual comprende las actividades de la industria química como ser:
1. Síntesis de Sustancias Romáticas Saborizantes
2. Materias Plásticas
3. Productos para la Industria Textil
4. Campo Energético ( producción de etanol, metanol, biogas e hisrógeno)
5. Biomineralurgia la Extracción de Minerales.
6. Industria Alimentaria (producción masiva de levaduras, algas y bacterias con miras al suministro de proteínas, aminoácidos, vitaminas y enzimas)
7. Producción Agrícola (donación y selección de variedades a partir de cultivos de células y tejidos, especies vegetales y animales transgénicas, producción de bioinsecticidas)
8. Industria Farmacéutica (vacunas, síntesis de hormonas, interferones y antibióticos)
Industria Farmacéutica
Obtención de proteínas de mamíferos:
Una serie de hormonas como la insulina, la hormona del crecimiento, factores de coagulación, etc. tienen un interés médico y comercial muy grande. Antes, la obtención de estas proteínas se realizaba mediante su extracción directa a partir de tejidos o fluidos corporales.
En la actualidad, gracias a la tecnología del ADN recombinante, se clonan los genes de ciertas proteínas humanas en microorganismos adecuados para su fabricación comercial. Un ejemplo típico es la producción de insulina que se obtiene a partir de la levadura Sacharomces cerevisae, en la cual se clona el gen de la insulina humana.
Obtención de vacunas recombinantes:
El sistema tradicional de obtención de vacunas a partir de microorganismos patógenos inactivos, puede comportar un riesgo potencial.
Muchas vacunas, como la de la hepatitis B, se obtienen actualmente por Ingeniería Genética. Como la mayoría de los factores antigénicos son proteínas lo que se hace es clonar el gen de la proteína correspondiente.

Proyecto HUGO
El Proyecto Genoma Humano es una investigación internacional que busca seleccionar un modelo de organismo humano por medio del mapeo de la secuencia de su ADN. Se inició oficialmente en 1990 como un programa de quince años con el que se pretendía registrar los 80.000 genes que codifican la información necesaria para construir y mantener la vida. Los rápidos avances tecnológicos han acelerado los tiempos esperándose que se termine la investigación completa en el 2003.
Los objetivos del Proyecto son:
o Identificar los aproximadamente 100.000 genes humanos en el ADN.
o Determinar la secuencia de 3 billones de bases químicas que conforman el ADN.
o Acumular la información en bases de datos.
o Desarrollar de modo rápido y eficiente tecnologías de secuenciación.
o Desarrollar herramientas para análisis de datos.
o Dirigir las cuestiones éticas, legales y sociales que se derivan del proyecto.
Clonación
La obtención de individuos "clónicos" exactamente iguales entre sí se conseguiría mediante la reproducción asexual de un único progenitor que aportase los núcleos de sus células somáticas.
Hace ya tiempo se desarrolló este proceso de donación con éxito en anfibios: mediante la extracción del núcleo de un huevo fecundado y sustitución por el núcleo de una célula somática (así, el individuo obtenido es genéticamente idéntico al donante del núcleo de la célula somática, y no hereda los caracteres de quienes formaron los gametos que produjeron el huevo).
Como el genoma de mamíferos sufre modificaciones irreversibles durante el desarrollo embrionario (las células se "especializan" rápidamente y pierden la totipotencia), parecía que había una barrera insalvable para realizar con éxito en laboratorio la práctica aberrante de un clonaje humano (pues el mensaje genético de las células de un progenitor adulto no estaría en condiciones de ser expresado de nuevo al trasplantarlo a un cigoto).
El éxito de Illmensee y Hóppe al obtener en 1980 clones de un embrión precoz de ratón rompió esa barrera natural. Posteriormente se ha repetido el experimento con otros animales. Y tenemos el llamativo caso de la oveja Dolly, dado a conocer en 1997.
Clonación de la Oveja Dolly
Manipulación Genética
Lo que hace la manipulación genética es modificar la información y el caudal genético de la especie. Es un procedimiento cuyas técnicas podrán ser utilizadas en benéfico de la humanidad (curación de enfermedades, creación de mejores razas de ganado, etc). También, puede usarse, aunque cueste decirlo pero es una realidad muy cercana, para la procreación y la experimentación sobre seres humanos.
Se quiere decir, que con el avance de la ciencia se puede exigir, por ejemplo que el bebé pronto a nacer este dotado de determinadas características a gusto y a elección de sus padres, o que nazca un niño superdotado, sin ninguna enfermedad, o bien un niño que traiga la cura a enfermedades de otras personas y muchas cosas más, que hacen ver al hombre como una máquina, como un instrumento de laboratorio o un objeto.
En este proceso es muy importante conocer la información de un cromosoma humano, esto llevó a un proyecto muy extraño y desconocido por mucho, pero que hoy resuena en todas partes: El Genoma Humano, con él se pudo descifrar de forma completa esa información cromosómica y qué tipo de información transmite ese gen.
Organismos Transgénicos
Un organismo transgénicos es aquél que ha sufrido la alteración de su material hereditario (genoma) por la introducción artificial (manipulación genética) de un gen exógeno, esto es, proveniente de otro organismo completamente diferente. Los organismos transgénicos muestran que aparentemente no existen barreras para mezclar los genes (DNA) de dos especies diferentes.
A mediados de los años sesenta se comenzaron a inventar bioherramientas moleculares con las cuales se podía componer y descomponer al DNA, lo que permitió intercambiar fragmentos específicos de la materia hereditaria de distintas especies e incluso transferirlos a microorganismos como las bacterias.
Después se descubrió que esta práctica la venía haciendo la naturaleza desde hace millones de años con los vegetales a través de la bacteria llamada Agrobacterium tumefaciens.
De ellos depende la continuidad de la vida, porque constituyen el enlace esencial entre generaciones. Esta transmisión de información genética de los padres a los hijos se denomina herencia. Desde principios de siglo, la ciencia de la Ingeniería Genética ha experimentado notables avances.
Definición de Ingeniería Genética:
La Ingeniería Genética es una rama de la genética que se concentra en el estudio del ADN, pero con el fin su manipulación. Es decir; es la manipulación genética de organismos con un propósito predeterminado.
HISTORIA
· 1871: Se aísla el ADN en el núcleo de una célula.
· 1909: Las unidades fundamentales de la herencia biológica reciben el nombre de genes.
· 1927: Se descubre que los rayos X causan mutaciones genéticas.
· 1943: El ADN es identificado como la molécula genética.
· 1940-50: Se descubre que cada gen codifica una única proteína.
· 1953: Se propone la estructura en doble hélice del ADN.
· 1956: Son identificados 23 pares de cromosomas en las células del cuerpo humano.
· 1966: Se descifra el código genético completo del ADN.
· 1972: Se crea la primera molécula de ADN recombinante en el laboratorio.
· 1973: Tienen lugar los primeros experimentos de ingeniería genética en los que genes de una especie se introducen en organismos de otra especie y funcionan correctamente.
· 1975: La conferencia de Asilomar evalúa los riesgos biológicos de las tecnologías de ADN recombinante, y aprueba una moratoria de los experimentos con estas tecnologías.
· 1976: Se funda en EE.UU. Genentech, la primera empresa de ingeniería genética.
· 1977: Mediante técnicas de ingeniería genética se fabrica con éxito una hormona humana en una bacteria.
· 1978: Se clona el gen de la insulina humana.
· 1980: El Tribunal Supremo de los EE.UU. dictamina que se pueden patentar los microbios obtenidos mediante ingeniería genética.
· 1982: Se crea el primer ratón transgénico (el "superratón"), insertando el gen de la hormona del crecimiento de la rata en óvulos de ratona fecundados.
· 1982: Se produce insulina utilizando técnicas de ADN recombinante.
· 1983: Se inventa la técnica PCR, que permite replicar (copiar) genes específicos con gran rapidez.
· 1984: Creación de las primeras plantas transgénicas.
· 1985: Se inicia el empleo de interferones en el tratamiento de enfermedades víricas.
· 1986: Se autorizan las pruebas clínicas de la vacuna contra la hepatitis B obtenida mediante ingeniería genética.
· 1988: Primera patente de un organismo producido mediante ingeniería genética.
· 1990: Primer tratamiento con éxito mediante terapia génica en niños con trastornos inmunológicos ("niños burbuja"). Se ponen en marcha numerosos protocolos experimentales de terapia génica para intentar curar enfermedades cancerosas y metabólicas.
· 1995: Se completan las primeras secuencias completas de genomas de organismos: se trata de las bacterias Hemophilus influenzae y Mycoplasma genitalium.
· 1996: Por primera vez se completa la secuencia del genoma de un organismo eucariótico, la levadura cervecera "Saccharomyces cerevisiae". Por otra parte, el catálogo de genes humanos que Victor McKusick y sus colaboradores de la Universidad John Hopkins actualizan cada semana contiene ya más de cinco mil genes conocidos. El Proyecto Genoma, coordinado por HUGO (Human Genome Organization), avanza a buen ritmo.
· 1997: Clonación del primer mamífero, una oveja llamada "Dolly".
· 1998: Es secuenciado el nemátodo Caenorhabditis elegans
· 1999: Es secuenciado el cromosoma 22 humano
· 2000: Es secuenciada la mosca de la fruta D. melanogaster /26 de junio se presenta 90% borrador genoma humano
· 2001: Se completa el genoma humano.
· 2003: Cincuenta años después del descubrimiento de la estructura del ADN, se completa la secuencia del Genoma Humano.
· 2004: La ONU y el Gobierno de Chile organizan el Primer Foro Global de Biotecnología, en la Ciudad de Concepción, Chile.
TECNICAS UTILIZADAS EN LA INGENIERIA GENETICA
La Gel-Electroforesis:
El objetivo de esta técnica es, mediante un método bioquímico, basado en reacciones enzimáticas para poder analizar de forma rápida la variabilidad genética que se puede encontrar en una población determinada.
Este método consiste en obtener las enzimas del material que se desea conocer mediante el empapamiento en papel secante, introduciendo dichos papeles en el gel sometiéndolos a electroforesis para lograr la migración de las proteínas.
Marcadores: sondas y RFLPs:
Este método consiste en individualizar cada gen sobre la cadena de ADN en los cromosomas, identificando su rol en el concierto genético.
Los marcadores son segmentos reconocibles de ADN a lo largo de la cadena que permite estimar la localización relativa de otros genes.
Los marcadores se dividen en:
Las Sondas:
Representan una herramienta insoslayable de la ingeniería genética para el diagnóstico de huéspedes en el ADN celular y virósico, y son útiles en la investigación a fin de determinar con exactitud posiciones nucleótidas durante la síntesis de oligonucleótidos, en el laboratorio.
Los RFLPs (polimorfismos de longitud de los fragmentos de restricción) :
Comúnmente son llamados “rif-lips”: se dan cuando una determinada enzima de restricción es aplicada sobre el ADN ésta lo “corta” en lugares precisos y conocidos que dan como resultado sondas de largos específicos (luego, las diferencias en el tamaño obedecerán a alteraciones en la composición genética y, en muchos casos, son la evidencia de anormalidades).
Técnica ELISA ( Enzyme Linked Inmuno Sorbent Assay):
Esta técnica comúnmente reconoce los epitomes, es decir lo que son configuraciones espaciales de zonas de proteínas o ácidos nucleicos. Está especialmente indicada cuando se trata de virus o viroides, pues éstos se encuentran habitualmente asociados a proteínas de las cuales deben ser separados para permitir que los fragmentos de ácidos nucleicos (la secuencia usada como sonda y aquella a analizar) puedan unirse.
Amplificación del gen (Southern blot y PCR):
Se utiliza para la amplificación del gen (u obtención de numerosas copias de un fragmento específico del ADN).
En la amplificación se cuentan con dos procedimientos que son, los más usados:
Southern Blot:
En ella se comienza con la separación del ADN digerido por enzimas de restricción, los fragmentos resultantes se separan por tamaño mediante la gel-electroforesis y luego se transfieren a un filtro.
El ADN adherido se desnaturaliza y se lo hibrida exponiéndolo a sondas radiactivas, lo que permitirá, después del lavado del filtro de soporte, para eliminar el material que no se haya asociado a las sondas, se detecta por rayos X los fragmentos de interés para su purificación y duplicación en procedimientos de estudios o manipulación.
PCR:
La PCR (reacción en cadena de la polimerasa) esta técnica permite la amplificación de genes en grandes cantidades a partir de muy poco ADN y mecánicamente.
Este sistema implica la adición de un cebador corto (un oligonucleótido) en cada extremo de la secuencia elegida de ADN, separando las dos cadenas de la doble hélice por calentamiento y exponiéndolas a un ADN polimerasa (enzima que naturalmente replica y repara el ADN) bacteriano que reconoce a los cebadores dispuestos a cierta distancia entre sí en lados opuestos de la cadena y duplica el número de cadenas de ADN en la muestra.
Vectores:
Son las partes del ADN que se pueden autorreplicar con independencia del ADN de la célula huésped donde crecen.
Permiten obtener múltiples copias de un trozo específico de ADN, lo que proporciona una gran cantidad de material fiable con el que trabajar.
Tipos de vectores:
1. Los Plásmidos
2. Los Lambda
3. Los Cósmidos
ADN Recombinante:
Esta técnica reposa sobre la observación de la recombinación del ADN in-vivo durante la conjugación y la transformación en el mundo de las bacterias.
Dicha técnica está regida por las siguientes tres premisas que son fundamentales:
· La lectura precisa de la secuencia de nucleótidos del ADN (método de Maxam-Gilbert y de Sanger).
· El recorte del ADN con las enzimas de restricción en los lugares precisos y conocidos (endonucleasas) y el ligamiento de los restantes fragmentos de ADN con otras enzimas (ligasas).
· La localización de vectores de clonación.
Las secuencias de ADN recombinadas pueden ser obtenidas por diferentes medios:
· Por síntesis química.
· Por copia del ARN mensajero, ósea una enzima llamada transcriptasa inversa.
· Por aislamiento de un gen de un cromosoma (técnica de “shot gun”).
ADN Sintético:
En esta técnica las moléculas son llamadas oligonucleótidos sintéticos debido a que constituyen una fuente de segmentos uniformes de ADN o ARN. Su preparación depende de la capacidad de bloquear selectivamente el extremo 3´o el extremo 5´ de los nucleótidos; esto asegura que las reacciones de condensación que forman los enlaces azúcar-fosfato ocurran en la secuencia adecuada para unir los nucleótidos en el orden deseado.
ARN Contrasentido:
Esta técnica se da en la producción de dichos ARN contrasentido en plantas y animales implicando por lo común la reintroducción del gen deseado (o parte de él) en tal forma que la banda de ADN se transcriba produciendo así ARN contrasentido. Esto se logra normalmente cortando el promotor del gen y colocando un nuevo promotor en el extremo 3´ del mismo.
Biochips:
Son dispositivos miniaturizados en los que se pueden depositar decenas de miles de sondas de material genético, conocido en posiciones predeterminadas, constituyendo una matriz.
Los biochips permiten conocer las mutaciones genéticas en los pacientes. Para realizar su estudio ellos se ponen en contacto con el material genético marcado, obtenido de una muestra de un paciente o de un experimento lo que genera un patrón de señales en cuya lectura se realizara en un escáner y posteriormente será interpretado con un ordenador.
APLICACIONES DE LA INGENIERIA GENETICA
LA INGENIERÍA GENÉTICA Y LA TERAPIA DE ENFERMEDADES HUMANAS:
En los humanos hay numerosas enfermedades de caracteres hereditarios o relacionados con alteraciones genéticas. En la mayoría de los casos ni siquiera se han identificado los genes responsables y en muy pocos casos se dispone del mecanismo para incorporar el gen correcto a las células del individuo afectado.
Existen varias líneas de investigación que se basan en:
· Transferir un gen humano normal a una bacteria, obteniendo de ella la sustancia necesaria para luego inocularla en el enfermo.
· Transferir un gen correcto a las células de una persona: terapia de células somáticas.
· En el futuro, si el gen se hiciera llegar a un óvulo, un espermatozoide o el zigoto, todas las células del individuo tendrían el gen normal: Terapia de células germinales (no es legal).
Ejemplos en los que ya en la actualidad se emplean estas técnicas o están en fase de ensayo o investigación:
1) Sustancias humanas producidas por bacterias
Consiste en la producción de sustancias humanas por bacterias a las que se les ha introducido el gen correspondiente.
Entre las sustancias que ya se obtienen mediante esta técnica están:
· La insulina
· La hormona del crecimiento
· El interferón.
· El factor VIII
2) La ingeniería genética en humanos
Se basa en la introducción de un gen correcto en las células humanas para sustituir un gen deficiente. Algunos casos en los que esta técnica está en estudio o en proceso de ensayo son:
· La Talasemia: Es un grupo de enfermedades relacionadas con la presencia de hemoglobina distinta de la normal.
Su tratamiento requiere el retirar las células de la medula ósea, introduciendo en ellas el gen correcto mediante un virus, volviéndolas al torrente sanguíneo.
Existen varias dificultades para la selección de las células que producen la hemoglobina entre todas las células de la medula ósea. Debido a que los genes introducidos se expresan poco y también se debe porque las alteraciones en su manifestación son peligrosas.
· La carencia de la enzima Adenosin Desaminasa (ADA): Es un fallo en los leucocitos. Enfermedad de los niños burbuja o inmunodeficiencia combinada grave (SCID).
Su incidencia es rara su tratamiento requiere retirar las células de la medula ósea o linfocitos T, inyectando en ellas la enzima ADA combinada con polietilenoglicol ( PEG ) que permite en ciertos casos frenar los efectos de la enfermedad.
3) Enfermedades sometidas a ensayos clínicos de terapia génica
· Cáncer: melanoma, riñón, ovario, neuroblastoma, garganta, pulmón, cerebro, hígado, mama, colon, próstata, leucemia, linfoma...
· Fibrosis quística
· Hemofilia
· Artritis reumatoide
Tratamiento genético del cáncer
En el cáncer, no se trata de corregir un defecto genético, sino de utilizar la manipulación génica para dotar de una nueva propiedad a las células, que permite aprovecharlas en algún aspecto de la patología oncológica con fines terapéuticos.
En la actualidad, se han desarrollado distintas estrategias en terapia génica del cáncer, y se están realizando diversos ensayos clínicos para tratar diferentes tipos de cáncer: de mama, ovario, cabeza y cuello, pulmón, próstata, células renales, tumor cerebral, leucemia mieloide aguda, leucemia mieloide crónica, linfomas, melanoma, mieloma múltiple y neuroblastoma.
Las diferentes estrategias aplicadas en los ensayos clínicos realizados en terapia génica del cáncer son:
a. Aumentar la actividad antitumoral de células inmunes por medio de citoquinas (interleucinas, factores de necrosis tumoral, factores estimulantes de colonias o interferones).
b. Aumentar la inmunogenicidad del tumor introduciendo antígenos foráneos (“vacunas tumorales”).
c. Introducir un gen “suicida” o de sensibilidad aumentada a determinados fármacos. Se transduce el gen de una enzima (timidina cinasa) que activa selectivamente un profármaco (aciclovir).
d. Bloquear la expresión de oncogenes mediante terapia antisentido.
e. Introducir genes supresores de tumores (p53).
f. Eliminación de las células tumorales mediante adenovirus oncolíticos.
g. Transferencia de genes con efecto antiangiogénico, para inhibir la formación de vasos sanguíneos inducidos por el propio tumor.
h. Introducir genes de resistencia a fármacos para reducir la toxicidad de la quimioterapia, particularmente sobre la médula ósea.
Tratamiento etiopatógeno en fibrosis quística
El único tratamiento etiológico curativo posible radica en la terapia génica, es decir, transferir el gen normal por medio de vectores víricos o lipídicos a las células epiteliales del aparato respiratorio.
Los ensayos clínicos en humanos efectuados hasta el día de hoy no consiguen en general los efectos deseados.
Es precisa la administración frecuente y repetida de adenovirus lo que da lugar a la formación de anticuerpos específicos. En estos momentos la terapia génica no es una opción terapéutica para estos pacientes.
La Terapia génica en hemofilia
Lo que se hace en el caso de la hemofilia es que se administraría al enfermo el gen del factor de coagulación que le falta en lugar de darle el factor.
Lo primero fue lograr tomar un gen de una célula y colocarlo en una célula diferente.
La terapia génica en la hemofilia requiere que:
1. El gen que está siendo transferido debe ser colocado en las células donde tendrá un funcionamiento normal y efectivo.
2. Una vez transferido debe funcionar por un periodo prolongado de tiempo.
3. Estos transgenes deben tener una expresión adecuada (producir suficiente factor).
4. No debe afectar el ADN normal.
5. No debe producir reacción inmune.
6. Que el proceso sea consistente, fácil, y tener éxito en todas las personas.
Existen dos tipos de transferencia:
1. In vivo: La transferencia ocurre dentro del paciente. Tiene la ventaja de requerir menos manipulación de laboratorio.
2. Ex vivo: La transferencia de los genes ocurre fuera del paciente.
La transferencia in vivo requiere menos manipulación en el laboratorio y podría ser usada a gran escala.
La ex vivo requiere más trabajo “quirúrgico” y de laboratorio pero puede ofrecer más seguridad y control.
TRANSFERENCIA IN VIVO:
El ADN que lleva las instrucciones requiere de un vector, los vectores más comunes son los virus, porque son estructuralmente simples, pequeñas secciones de ADN, ARN y una pocas proteínas, son fáciles de estudias, pueden ser alterados genéticamente y tiene la tendencia natural a adherirse a tipos específicos de células y de transferirle su ADN.
Otros métodos que no usan vectores virales son como encapsular el ADN dentro de una capa lipídica para protegerlo de la descomposición hasta que pueda ser absorbido por la las células.
Otra propuesta es la unión del gen a una proteína. Para que el efecto dure el gen transferido debe permanecer estable y funcionando dentro de las células y las células mismas deben permanecer en función.
Algunos vectores pueden integrar su ADN. O sea que el ADN transferido se une físicamente con el ADN de la célula de la persona. Así el gen transferido será reproducido cada vez que el ADN de la célula sea reproducido. Una forma de hacer que el gen dure más es colocarlo en células estables y de larga duración como células hepáticas o musculares.
Terapia Génica
La terapia génica consiste en la aportación de un gen funcionante a las células que carecen de esta función, con el fin de corregir una alteración genética o enfermedad adquirida.

La terapia génica se divide en dos categorías:
· Alteración de células germinales (espermatozoides u óvulos): Es aquella dirigida a modificar la dotación genética de las células implicadas en la formación de óvulos y espermatozoides y, por tanto, transmisible a la descendencia. Este tipo de terapia génica sería la indicada para corregir de forma definitiva las enfermedades congénitas. Este tipo de terapias no ha sido practicado en humanos debido consideraciones de carácter ético.
· Terapia somática celular: Uno o más tejidos son sometidos a la adición de uno o más genes terapéuticos, mediante tratamiento directo o previa extirpación del tejido. Esta técnica se ha utilizado para el tratamiento de cánceres o enfermedades sanguíneas, hepáticas o pulmonares.
Algunas de las enfermedades susceptibles a la terapica génica:
| · Hemofilia |
| · Alcoholismo |
| · Corea de Huntington |
| · Anemia Falciforme |
| · Fibrosis Quística |
| · Miopatía de Duchenne |
| · Deficiencia de ADA |
Pero los alcances de la terapia génica no sólo se limitan a enfermedades genéticas, sino también a algunas de origen externo al organismo: virales, bacterianas, protozoicas, etc. Por ejemplo, un grupo de científicos estadounidenses empleó técnicas de terapia génica contra el virus del SIDA. Lo que se hizo fue que sintetizaron un gen capaz de detener la multiplicación del virus responsable de la inmunodeficiencia, y lo insertaron en células humanas infectadas.
El resultado fue exitoso: el virus detuvo su propagación e incluso aumentó la longevidad de ciertas células de defensa, las CD4.
Los criterios para seleccionar una enfermedad humana como candidata al tratamiento mediante terapia génica son:
– La enfermedad ha de amenazar gravemente la vida del paciente.
– Los órganos, tejidos y tipos celulares afectados por la enfermedad han de estar bien caracterizados.
– La versión normal del gen defectuoso debe haber sido aislada y clonada.
– El gen normal ha de poder ser introducido en una fracción significativa de células del tejido afectado, o bien la introducción del gen en un tejido accesible, como la médula ósea, puede beneficiar indirectamente el curso de la enfermedad en el tejido afectado.
– El gen debe poderse expresar adecuadamente, generando una cantidad suficiente de proteína normal.
Biotecnología
Las biotecnologías consisten en la utilización de bacterias, levaduras y células animales en cultivo para la fabricación de sustancias específicas. Permiten, gracias a la aplicación integrada de los conocimientos y técnicas de la bioquímica, la microbiología y la ingeniería química aprovechar en el plano tecnológico las propiedades de los microorganismos y los cultivos celulares. Permiten producir a partir de recursos renovables y disponibles en abundancia gran número de sustancias y compuestos.
Aplicadas a escala industrial, las tales biotecnologías constituyen la bioindustria, la cual comprende las actividades de la industria química como ser:
1. Síntesis de Sustancias Romáticas Saborizantes
2. Materias Plásticas
3. Productos para la Industria Textil
4. Campo Energético ( producción de etanol, metanol, biogas e hisrógeno)
5. Biomineralurgia la Extracción de Minerales.
6. Industria Alimentaria (producción masiva de levaduras, algas y bacterias con miras al suministro de proteínas, aminoácidos, vitaminas y enzimas)
7. Producción Agrícola (donación y selección de variedades a partir de cultivos de células y tejidos, especies vegetales y animales transgénicas, producción de bioinsecticidas)
8. Industria Farmacéutica (vacunas, síntesis de hormonas, interferones y antibióticos)
Industria Farmacéutica
Obtención de proteínas de mamíferos:
Una serie de hormonas como la insulina, la hormona del crecimiento, factores de coagulación, etc. tienen un interés médico y comercial muy grande. Antes, la obtención de estas proteínas se realizaba mediante su extracción directa a partir de tejidos o fluidos corporales.
En la actualidad, gracias a la tecnología del ADN recombinante, se clonan los genes de ciertas proteínas humanas en microorganismos adecuados para su fabricación comercial. Un ejemplo típico es la producción de insulina que se obtiene a partir de la levadura Sacharomces cerevisae, en la cual se clona el gen de la insulina humana.
Obtención de vacunas recombinantes:
El sistema tradicional de obtención de vacunas a partir de microorganismos patógenos inactivos, puede comportar un riesgo potencial.
Muchas vacunas, como la de la hepatitis B, se obtienen actualmente por Ingeniería Genética. Como la mayoría de los factores antigénicos son proteínas lo que se hace es clonar el gen de la proteína correspondiente.

Proyecto HUGO
El Proyecto Genoma Humano es una investigación internacional que busca seleccionar un modelo de organismo humano por medio del mapeo de la secuencia de su ADN. Se inició oficialmente en 1990 como un programa de quince años con el que se pretendía registrar los 80.000 genes que codifican la información necesaria para construir y mantener la vida. Los rápidos avances tecnológicos han acelerado los tiempos esperándose que se termine la investigación completa en el 2003.
Los objetivos del Proyecto son:
o Identificar los aproximadamente 100.000 genes humanos en el ADN.
o Determinar la secuencia de 3 billones de bases químicas que conforman el ADN.
o Acumular la información en bases de datos.
o Desarrollar de modo rápido y eficiente tecnologías de secuenciación.
o Desarrollar herramientas para análisis de datos.
o Dirigir las cuestiones éticas, legales y sociales que se derivan del proyecto.
Clonación
La obtención de individuos "clónicos" exactamente iguales entre sí se conseguiría mediante la reproducción asexual de un único progenitor que aportase los núcleos de sus células somáticas.
Hace ya tiempo se desarrolló este proceso de donación con éxito en anfibios: mediante la extracción del núcleo de un huevo fecundado y sustitución por el núcleo de una célula somática (así, el individuo obtenido es genéticamente idéntico al donante del núcleo de la célula somática, y no hereda los caracteres de quienes formaron los gametos que produjeron el huevo).
Como el genoma de mamíferos sufre modificaciones irreversibles durante el desarrollo embrionario (las células se "especializan" rápidamente y pierden la totipotencia), parecía que había una barrera insalvable para realizar con éxito en laboratorio la práctica aberrante de un clonaje humano (pues el mensaje genético de las células de un progenitor adulto no estaría en condiciones de ser expresado de nuevo al trasplantarlo a un cigoto).
El éxito de Illmensee y Hóppe al obtener en 1980 clones de un embrión precoz de ratón rompió esa barrera natural. Posteriormente se ha repetido el experimento con otros animales. Y tenemos el llamativo caso de la oveja Dolly, dado a conocer en 1997.
Clonación de la Oveja Dolly

Manipulación Genética
Lo que hace la manipulación genética es modificar la información y el caudal genético de la especie. Es un procedimiento cuyas técnicas podrán ser utilizadas en benéfico de la humanidad (curación de enfermedades, creación de mejores razas de ganado, etc). También, puede usarse, aunque cueste decirlo pero es una realidad muy cercana, para la procreación y la experimentación sobre seres humanos.
Se quiere decir, que con el avance de la ciencia se puede exigir, por ejemplo que el bebé pronto a nacer este dotado de determinadas características a gusto y a elección de sus padres, o que nazca un niño superdotado, sin ninguna enfermedad, o bien un niño que traiga la cura a enfermedades de otras personas y muchas cosas más, que hacen ver al hombre como una máquina, como un instrumento de laboratorio o un objeto.
En este proceso es muy importante conocer la información de un cromosoma humano, esto llevó a un proyecto muy extraño y desconocido por mucho, pero que hoy resuena en todas partes: El Genoma Humano, con él se pudo descifrar de forma completa esa información cromosómica y qué tipo de información transmite ese gen.
Organismos Transgénicos
Un organismo transgénicos es aquél que ha sufrido la alteración de su material hereditario (genoma) por la introducción artificial (manipulación genética) de un gen exógeno, esto es, proveniente de otro organismo completamente diferente. Los organismos transgénicos muestran que aparentemente no existen barreras para mezclar los genes (DNA) de dos especies diferentes.
A mediados de los años sesenta se comenzaron a inventar bioherramientas moleculares con las cuales se podía componer y descomponer al DNA, lo que permitió intercambiar fragmentos específicos de la materia hereditaria de distintas especies e incluso transferirlos a microorganismos como las bacterias.
Después se descubrió que esta práctica la venía haciendo la naturaleza desde hace millones de años con los vegetales a través de la bacteria llamada Agrobacterium tumefaciens.
sábado, 30 de junio de 2012
Mutaciones
Una mutación es cualquier alteración que sufra el material genético (los genes, los cromosomas o el cariotipo en su conjunto). El término “mutación” fue introducido por De Vries que lo aplicó a la aparición súbita de un nuevo gen. Al nuevo alelo se le denomina "mutante" y al primitivo "normal" o "salvaje". Las frecuencias de mutaciones espontáneas son muy bajas y dependen mucho del lugar que ocupen los genes en el cromosoma entre otras cosas. Una mutación puede producirse en cualquier célula de un organismo pero solo serán heredables las que se producen en las células germinales (los gametos o las que dan lugar a los gametos); a éstas las llamaremos mutaciones germinales mientras que al resto las llamaremos mutaciones somáticas. Podemos clasificar las mutaciones en dos tipos:
| Génicas o puntuales si el cambio afecta a un determinado gen. | Adición de un nucleótido. Pérdida de un nucleótido | |
| Cambio de un nucleótido por otro (Sustitución) | Transición Transversión | |
| Cromosómicas si el cambio afecta a un cromosoma total o parcialmente, o al cariotipo. | Estructurales (cromosómicas propiamente dichas) | Deleción Duplicación Inversión Translocación |
| Genómicas | Euploidías | Triploide, Tetraploide, etc. |
| Aneuploidías | 2n+1 ó 2n-1 |
Las mutaciones pueden ser naturales (espontáneas) o inducidas (provocadas artificialmente por radiaciones, sustancias químicas y otros agentes mutágenos).
MUTACIONES GÉNICAS O PUNTUALES
Son aquellas que producen alteraciones en las secuencias de nucleótidos de un gen.
1.1. SUSTITUCIONES DE PARES DE BASES
Éstas pueden ser:
Ø Transiciones: Es el cambio en un nucleótido de una base púrica por otra púrica o de una pirimidínica por otra pirimidínica.
Ø Transversiones: Es el cambio de una base púrica por una pirimidínica o viceversa.
Provocan la alteración de un único triplete y, por tanto, salvo que indiquen un triplete de parada, o un aminoácido del centro activo de un enzima, pueden no ser perjudiciales.
1.2. PÉRDIDA O INSERCIÓN DE NUCLEÓTIDOS
Se produce un corrimiento en el orden de lectura. Pueden ser:
Ø Adiciones génicas: Es la inserción de nucleótidos en la secuencia del gen.
Ø Deleciones génicas: Es la pérdida de nucleótidos.
Salvo que las adiciones o deleciones se compensen entre sí, pueden alterar la secuencia de aminoácidos de la proteína codificada y sus consecuencias suelen ser graves.
1.3. CAUSAS
Las mutaciones génicas o puntuales, son debidas a errores que se producen durante la duplicación del ADN. Pueden producirse por 3 causas: por errores de lectura durante la replicación del ADN, por lesiones fortuitas, como, por ejemplo, la rotura del enlace que une una base nitrogenada a la desoxirribosa, o por transposiciones (cambios de posición) de ciertos segmentos del gen.
ERRORES DE LECTURA
Pueden aparecer durante la replicación del ADN pueden deberse a dos causas:
a) Cambios tautoméricos
Cada base nitrogenada puede presentarse en dos formas diferentes denominadas formas tautoméricas o tautómeros, una es la normal y la otra la rara. Ambas formas están en equilibrio, y espontáneamente se pasa de la una a la otra, lo que se denomina cambio tautomérico. Esto, si sucede durante la replicación, implica mutaciones, ya que cambia la base complementaria en la nueva hebra de ADN. Por ejemplo la forma normal de la G se complementa con la C, mientras que la forma rara de G, es decir, su forma tautomérica, lo hace con la T.

b) Cambios de fase
Son deslizamiento de la hebra que se está formando sobre la hebra molde, de forma que quedan bucles al volverse a emparejar. El crecimiento sigue y la diferencia queda fijada, originándose así la mutación.

LESIONES FORTUITAS
Son alteraciones de la estructura de uno o de varios nucleótidos, que aparecen de forma natural. Las más frecuentes son:
a) Despurinización
Pérdida de purinas por rotura del enlace entre éstas y las desoxirribosas. Se dan unas 5.000 a 10.000 por día en cada célula humana.
b) Desaminación
Pérdida de grupos amino en las bases nitrogenadas, que entonces se emparejan con una distinta de la normal. Se producen unas 100 por genoma y día.
c) Dímero de timina
Enlace entre dos timinas contiguas. Generalmente provocado por los rayos ultravioleta de la radiación solar.
TRANSPOSICIONES
Son cambios de lugar espontáneos de determinados segmentos de ADN, los denominados elementos genéticos transponibles. Éstos pueden ser menores que un gen (como las llamadas secuencias de inserción), un gen, o un grupo de genes (como los denominados transposones). Las transposiciones pueden producir mutaciones génicas si el elemento genético transpuesto se sitúa dentro de un gen o mutaciones cromosómicas si pasa a un lugar donde no hay un gen, ya sea dentro del mismo cromosoma o incluso a otro cromosoma.

1.4. SISTEMAS DE REPARACIÓN
Esto sistemas revisan constantemente el ADN recién sintetizado y arreglan las lesiones. Existen 3 sistemas de reparación:
a) Reparación con escisión del ADN
Este proceso se inicia con una endonucleasa, que detecta el error y produce dos cortes a ambos lados del error. Luego actúa una enzima exonucleasa que elimina todos los nucleótidos del segmento cortado. A continuación la ADN-polimerasa I sintetiza el segmento de forma correcta, y finalmente una ADN-ligasa une su extremo final.

b) Reparación sin escisión del ADN
Se conocen mecanismos directos de reversión de las lesiones. Por ejemplo, el caso de las enzimas fotorreactivas, unas enzimas que se activan con la luz y que son capaces de romper los enlaces entre dos pirimidinas contiguas eliminando los dímeros de timina.
c) Sistema SOS
Si por la acción prolongada de un agente mutágeno importante se produce un número elevado de faltas o alteraciones de bases nitrogenadas en la hebra patrón, puede ser que se inicie la duplicación del ADN sin que los mecanismos de reparación hayan acabado de arreglarlas. Como la ADN-polimerasa sólo reconoce A, T, C y G, la duplicación quedaría paralizada. Para evitarlo existe un sistema enzimático denominado enzimas correctoras del sistema SOS que elimina este bloqueo pero a expensas de introducir una base complementaria al azar y por ello muy probablemente errónea. Se evita el bloqueo de la replicación pero se originan células hijas con muchas mutaciones. Así pues, es el sistema SOS el que permite que las alteraciones originadas por esos agentes mutágenos acaben dando células con mutaciones. Si estas afectan al control de la división celular, pueden ser el origen de las células cancerosas.

MUTACIONES CROMOSÓMICAS
Podemos diferenciarlas en dos clases:
a) Mutaciones cromosómicas propiamente dichas o estructurales, se producen por un cambio en la estructura de los cromosomas.
b) Mutaciones genómicas. Se producen por un cambio en el número de los cromosomas.
a. MUTACIONES CROMOSÓMICAS ESTRUCTURALES
Las cromosómicas propiamente dichas se producen porque durante la meiosis los cromosomas pueden romperse y soldarse y no siempre consiguen hacerlo correctamente, de tal suerte que el fragmento de un cromosoma puede ir a parar a otro o puede perderse, repetirse, etc. Considerando todo esto podemos clasificarlas en cuatro clases:
a) Deleciones o deficiencias. Consiste en la pérdida de un fragmento del cromosoma.
b) Duplicaciones. Consiste en la repetición de un fragmento, normalmente en serie.
c) Translocaciones. El fragmento de un cromosoma o el cromosoma entero se fusiona con otro cromosoma que puede ser homólogo (translocación no recíproca) o no homólogo (translocación recíproca).
d) Inversiones. Un segmento cromosómico está invertido (girado 180º) respecto al original. Si se ve afectado el centrómero decimos que es una inversión pericéntrica, si no está afectado el centrómero, decimos que es una inversión paracéntrica.

Todas estas mutaciones son detectables citológicamente durante la meiosis a la hora de emparejarse los homólogos. Si hay mutaciones de esta clase, se ven al microscopio en forma de lazos, nudos, etc. incluso puede ser imposible el emparejamiento de homólogos, pueden producirse fracturas durante la disyunción en la anafase, puede que sea imposible la disyunción, etc.


Origen de las mutaciones cromosómicas estructurales
Todos los cambios estructurales que se producen en los cromosomas pueden explicarse por la rotura y reunión de sus fragmentos. Podemos considerar 4 casos posibles, los dos primeros se refieren a un solo cromosoma y los dos últimos a parejas de cromosomas.
1er caso. Las roturas están en el mismo brazo cromosómico y afectan a un solo cromosoma. Al producirse la rotura los fragmentos pueden reunirse de dos formas distintas, una da lugar a una inversión paracéntrica y otra a una deleción más un fragmento acéntrico que se pierde.

 2º caso. Las roturas están en distinto brazo cromosómico pero en el mismo cromosoma. La reunión de los fragmentos después de la rotura puede realizarse también de dos formas distintas, una produce una inversión pericéntrica y otra produce un fragmento acéntrico que se pierde y un cromosoma circular (deleción).
 3ercaso. Las roturas están en distinto brazo cromosómico y afectan a dos cromosomas homólogos. Después de la rotura la reunión de los fragmentos produce los siguientes resultados: o una duplicación más una deleción o un cromosoma dicéntrico (en el que se aprecia una duplicación y una deleción simultáneamente) más un fragmento acéntrico que se pierde.
4º caso. Las roturas están en distinto brazo cromosómico y afectan a dos cromosomas no homólogos. Después de la rotura son posibles dos soluciones para soldar los fragmentos: la primera da lugar a otros dos cromosomas con fragmentos intercambiados en los que se ha producido una translocación recíproca y la segunda da lugar a un cromosoma dicéntrico que es inestable, más un fragmento acéntrico inviable. Se ha producido en conjunto una deleción.

Efecto fenotípico de las mutaciones cromosómicas estructurales
Las deleciones y duplicaciones producen un cambio en la cantidad de genes y por tanto tienen efectos fenotípicos, por lo general deletéreos (letales, mortales). Sin embargo las inversiones y translocaciones no suelen tener efecto fenotípico, aunque de las translocaciones pueden derivarse problemas de fertilidad por aparcamiento defectuoso de los cromosomas durante la gametogénesis o la aparición de descendientes con anomalías.
Importancia evolutiva de las mutaciones cromosómicas estructurales
La deleción apenas tiene importancia evolutiva, mientras que la duplicación, en cambio, posee una gran importancia evolutiva. A su vez las inversiones y translocaciones están también asociadas de una forma importante a la evolución, por ejemplo la fusión de dos cromosomas acrocéntricos puede dar lugar a uno metacéntrico, como ha ocurrido con el cromosoma 2 de la especie humana, que es el resultado de la fusión de dos cromosomas de un mono antropomorfo antepasado. Se piensa que los distintos genes de la hemofilia se han adquirido, a lo largo de la evolución, por duplicación.
b. MUTACIONES GENÓMICAS
Las mutaciones genómicas, cambian el número de cromosomas del genoma de un individuo, su cariotipo presentará un número anormal de cromosomas. Las más frecuentes son debidas a un mal reparto de los cromosomas durante la meiosis, con frecuencia debido a alguna de las alteraciones cromosómicas que provocan meiosis difíciles: inversiones, duplicaciones, etc. Pueden ser de dos tipos:
1. Euploidias, se trata de alteraciones que afectan al número de juegos completos de cromosomas con relación al número normal de cromosomas de la especie:
Ø Monoploide si presenta un solo juego de cromosomas. Serán individuos haploides (n).
Ø Poliploide, Si presentan más de dos juegos cromosómicos, en general Xn (siendo X un número entero cualquiera). Será triploide si 3n, tetraploide si 4n, etc. Las podemos dividir según el origen de los juegos extras de cromosomas en:
ü Autopoliploidía, si todos los cromosomas proceden de la misma especie.
ü Alopoliploidía, si los juegos de cromosomas proceden de la hibridación de dos o más especies.
ü Origen. La no disyunción en la meiosis de todos los cromosomas homólogos, seguida de la fecundación entre los gametos resultantes, puede producir cigotos haploides o triploides. La formación de gametos diploides puede producirse por fallos en la meiosis, esto dará lugar durante la fecundación a cigotos triploides o tetraploides. En las plantas pueden conseguirse tetraploides experimentalmente por tratamientos con colchicina.
ü Efectos fenotípicos. En general las anomalías de los euploides son menores que en los aneuploides en los que los efectos fenotípicos son mayores al no mantenerse las dosis relativas de genes.


2. Aneuploidías, cuando afectan a una parte del juego cromosómico (el individuo presenta algún cromosoma de más o de menos):
Ø Monosomías, 2n-1. Si falta un cromosoma completo.
Ø Trisomías, 2n+1. Si el individuo tiene un cromosoma extra.

Efectos fenotípicos: Algunos de los síndromes por aneuploidías más destacados en la especie humana figuran en la tabla a continuación:
ANEUPLOIDÍAS AUTOSÓMICAS | ||
| SÍNDROME | MUTACIÓN | CARACTERÍSTICAS FENOTÍPICAS |
| Down | Trisomía 21 | CI medio de 50, talla baja, ojos oblicuos, macroglosia, anomalías digestivas y cardiocirculatorias, hipotonía muscular, etc. |
| Edwards | Trisomía 18 | Retraso mental y psicomotor, anomalías en las extremidades, labio leporino, etc |
| Patau | Trisomía 13 | Labio leporino, paladar hendido, microcefalia, microftalmia, polidactilia, etc. |
| ANEUPLOIDÍAS EN LOS CROMOSOMAS SEXUALES | ||
| Turner | X0 | Mujeres, inmadurez emocional, retraso mental (no siempre), cuello corto, tórax ancho, sin desarrollo sexual secundario, esterilidad, riñón en herradura, etc. |
| Klinefelter | XXY | Varones, genitales no desarrollados, retraso mental, talla alta, obesidad, diabetes, etc. |
| Triple X | XXX | Mujeres fenotípicamente normales, CI bajo o retraso mental |
| Jakob o doble Y | XYY | Varones, talla alta, en algunos casos oligofrenia y alteraciones de la conducta. |


AGENTES MUTÁGENOS
Es un agente mutágeno todo factor capaz de aumentar la frecuencia de mutación natural. Los principales agentes mutágenos conocidos son:
Ø Las radiaciones electromagnéticas como los rayos X y los rayos g
Ø Las radiaciones corpusculares como los rayos a, los rayos b, y los flujos de protones y neutrones que generan los reactores nucleares.
Ø Las radiaciones solares, como las ultravioletas, porque producen dímeros de timina.
Ø Ciertas sustancias químicas como son:
ü Los análogos de las bases nitrogenadas como el 5-bromouracilo, la 2-aminopurina, el AZT (azidotimidina) empleado contra el SIDA, etc.
ü El ác. nitroso (HNO2), porque desamina las bases nitrogenadas.
ü El formaldehído.
ü El sulfuro de dicloroetilo.
ü Las acridinas.
ü Ciertas drogas como el LSD.
ü Los alcaloides como la cafeína, la nicotina, etc.
ü El gas mostaza, el agua oxigenada el ciclamato, etc.
Ø Ciertos factores físicos corno los ultrasonidos, choques térmicos, centrifugación, etc.
Es cierto que no todos estos factores tienen el mismo potencial como mutágenos, así la nicotina es mucho más mutágena que la cafeína, las dosis de ciclamatos tienen que ser muy altas para que resulten peligrosas, las radiaciones provocadas por los reactores o explosiones nucleares tienen un altísimo potencial mutágeno, los rayos ultravioleta son muy poco penetrantes y a dosis moderadas resultan beneficiosos, etc.
Las células blanco de las mutaciones pueden ser tanto las somáticas como las germinales; las germinales se heredan mientras que las somáticas, aunque no transcienden a la generación siguiente, son una de las principales causas de la aparición de los cánceres más frecuentes.
Las células poseen mecanismos que les permiten reparar la mayoría de las mutaciones, especialmente las génicas, pero esta capacidad disminuye con la edad del individuo y con su estado físico y psíquico en un momento determinado, por ejemplo disminuye en los estados depresivos, mala nutrición, etc.
MUTACIONES Y EVOLUCIÓN
La evolución es el proceso por el que las poblaciones cambian sus características genéticas a lo largo del tiempo. Llamamos “pool” génico de una población al conjunto de genes de la misma, formado por todos los alelos de los genes que tienen los individuos que la constituyen. Una combinación favorable de alelos en un individuo favorece su supervivencia y por tanto su reproducción.
La mutación es la fuente primaria de variación, pero no la única. La recombinación génica incrementa la variabilidad. Las características de un organismo dependen de las proteínas que lo forman, es decir de la secuencia de nucleótidos.
La mayoría de los cambios evolutivos se producen por acumulación gradual de mutaciones en los genes y por variaciones en su número y organización. La mayor parte de las mutaciones génicas son deletereas y las que se han mantenido producen una mejora. Y estas son las esenciales para la evolución.
La separación entre los miembros de una población impide el intercambio genético entre los mismos, esto, produce cada vez más diferenciación al necesitar adaptarse a ambientes distintos. Cuando con el tiempo, las diferencias impiden la reproducción entre los miembros de esos grupos, decimos que se trata de especies distintas.
CÁNCER: CAUSAS GENÉTICAS Y AMBIENTALES
El cáncer se produce cuando un grupo de células no responde a los controles de proliferación y diferenciación celulares y se reproduce aceleradamente. La masa de células que resulta, daña los tejidos limítrofes e incluso puede fraccionarse, emigrar hacia otros puntos utilizando el sistema circulatorio y establecer colonias en otros órganos; proceso que denominamos metástasis. A estos grupos de células en continua mitosis descontrolada se les denomina tumores. Si el tumor está muy localizado y no crece indefinidamente, decimos que se trata de un tumor benigno. Si no tiene sus límites bien definidos y crece invadiendo y destruyendo los tejidos vecinos, decimos que es un tumor maligno o cáncer maligno.
La transformación de una célula normal en cancerosa, como vamos a ver a continuación, está relacionada con el genotipo de cada individuo y con ciertos factores ambientales que alteran su ADN, como son las costumbres alimenticias, ciertos virus y la exposición o contacto con agentes cancerígenos (o mutágenos).
A continuación observamos una fotografía de una masa de células tumorales:

Causas génicas
Dentro del genoma existen una serie de genes encargados del control de la proliferación y muerte de las células. Estos genes codifican información para diversos tipos de proteínas desde receptores de factores de crecimiento, a proteínas que controlan el ciclo celular, o factores de transcripción que regulan la expresión de otros genes. La alteración de estos mecanismos de control es la responsable de que una célula prolifere desordenadamente y se transforme en célula cancerosa. Generalmente esta transformación requiere la alteración de varios de estos mecanismos de control.
Atendiendo a todo esto podemos concluir en los siguientes conceptos:
Ø Protooncogenes: Son los genes normales que están implicados en el crecimiento y diferenciación celular.
Ø Antioncogenes: Genes normales que inhiben la proliferación descontrolada de las células.
Ø Oncogenes: Son las versiones alteradas (mutadas) de los protooncogenes o de los antioncogenes, cuya presencia en una célula le confiere características neoplásicas o cancerosas.
Los oncogenes pueden actuar por tres vías principales:
1. Adquisición de genes alterados. Consiguen alterar a la célula y hacerla proliferar desordenadamente.
2. Pérdida de antioncogenes. Estos genes inhiben las mitosis descontroladas de las célula, son de carácter dominante y por lo tanto deben perderse las dos copias del gen en cuestión para que se transforme la célula normal en cancerosa. Es el caso del p53, el oncogen más importante de todos los detectados hasta el momento, está presente en el 50% de los tumores humanos.
3. Bloqueo de la apoptosis (o muerte celular programada). Esto puede ocurrir por presencia de un gen que inhiba este proceso o por pérdida de cualquiera de los genes que se encargan de inducir este proceso, que es natural y espontáneo cuando algo va mal en la célula o simplemente cuando envejece.
c. CÁNCER PRODUCIDO POR VIRUS
En animales de laboratorio se conocen numerosos virus que pueden provocar cánceres, son los virus oncogénicos. Estos virus poseen uno o más genes, que también llamamos oncogenes, que son capaces de inducir la transformación de células normales en cancerosas. El ejemplo más conocido es el del sarcoma de Rous de los pollos, el virus oncogénico de este tipo de sarcoma posee el oncogen src. Este virus es muy conocido porque fue en su material genético donde se descubrió la retrotranscriptasa o transcriptasa inversa, enzima que poseen algunos virus con ARN que cataliza la formación de cadenas de ADN utilizando al ARN como molde.
d. CÁNCER PRODUCIDO POR SUSTANCIAS QUÍMICAS O POR RADIACIONES
En los humanos, la mayoría de los cánceres, excepto algunos tipos de cáncer de hígado y de leucemia, no están relacionados con virus, sino con ciertos agentes físicos o químicos que denominamos agentes cancerígenos que se supone producen la transformación de los protooncogenes y/o antioncogenes en oncogenes. Básicamente son los mismos agentes mutágenos que ya estudiamos, es decir, agentes que aumentan la mutabilidad de los genes.
La capacidad de producir cáncer de ciertos agentes químicos y físicos se conoció por vía epidemiológica hace ya algunos años:
Ø En 1775, un médico inglés atribuyó la alta incidencia de cáncer de escroto en los deshollinadores londinenses, al hollín. Hoy sabemos que el hollín, como toda sustancia carbonizada, es un agente cancerígeno.
Ø A principios del siglo XX se establece claramente la relación que existe entre el cáncer y las radiaciones, muchos investigadores pioneros en el estudio de la naturaleza de las radiaciones y los elementos radiactivos murieron víctimas de procesos cancerosos (Marie Curie y su hija entre otros).
Ø De todos es conocido el efecto cancerígeno del tabaco, no solo respecto al cáncer de pulmón, sino que también está directamente relacionado con otros tipos de cánceres como: laringe, estómago, etc.

En la práctica todos los agentes mutagénicos son también agentes cancerígenos: anilinas, benceno, formaldehído, las radiaciones UV y X las radiaciones nucleares, tabaco, el alquitrán (también presente en los cigarrillos), los ahumados el pan tostado y chamuscado, el amianto, las bebidas alcohólicas de alta graduación, algunos conservantes y colorantes artificiales, etc.
Los efectos de los agentes cancerígenos no son inmediatos, como sucede con los agentes mutágenos, es precisa la repetición y la intervención de otros factores complementarios para que se desencadene la transformación de una célula normal en célula cancerosa. Se cree que además de la exposición repetida frente el agente mutágeno, es necesario un proceso promotor, por ejemplo, una recombinación que sitúe el oncogen en posición de ser transcrito y por lo tanto de que se exprese, dando lugar a la aparición de grandes cantidades de la proteína alterada capaz de la transformación de la célula normal en cancerosa.
También se ha comprobado que existen sustancias anticancerígenas naturales que actúan activando los sistemas de reparación del ADN o evitando los procesos promotores. Estas sustancias se encuentran principalmente en las frutas, verduras, aceite de oliva y en el pescado azul y hoy por hoy constituyen la mejor prevención contra el cáncer.
Suscribirse a:
Entradas (Atom)