Johann Friedrich Miesscher fue el primer científico que consiguió aislar el núcleo en 1869. Para ello, separó la membrana celular y el citoplasma de las células del esperma de salmón y de pus de heridas abiertas.

La sustancia obtenida constituía el núcleo y se denominó nucleínas. Posteriormente, Richard Altmann identificó estas nucleínas como ácidos y las denominó ácidos nucleicos.
Años más tarde, Robert Feulgen describió en 1914 una tinción concreta para el núcleo celular. Esto permitió comprobar que todas las células eucariotas tienen núcleo.

En los años 20, P.A. Levene investigó los componentes del ADN. Llegó a la conclusión de que estaba compuesto por cuatro bases nitrogenadas: citosina y timina (piramidinas) y guanina y adenina (purinas); azúcar desoxirribosa y un grupo fosfato. También demostró que se encuentran unidos en el orden fosfato-azúcar-base formando un nucleótido.
Los neumococos de Griffith
En 1928, el médico inglés Frederick Griffith realizó sus experimentos de infección de ratones con los neumococos (bacterias que causan la neumonía en humanos). La inoculación de estas bacterias en los ratones causa su muerte en 24hs y su patogenicidad se debe a la cápsula de polisacáridos que poseen por fuera de su pared celular. Esta cápsula le otorga a las colonias de neumococos un aspecto brillante o liso, denominado S. Existen mutantes de neumococos que no producen la cápsula de polisacáridos y forman colonias de aspecto rugoso o R. Griffith descubrió que estas mutantes no mataban a los ratones. Pero sin embargo, si mezclaba a los neumococos R con neumococos S previamente muertos por calor, entonces los ratones se morían. Aún más, en la sangre de estos ratones muertos Griffith encontró neumococos con cápsula (S). Es decir que en las bacterias S muertas había “algo” capaz de transformar a las bacterias R en patógenas y este cambio era permanente y heredable! Más tarde se demostró que esta transformación también se producía si se incubaban los neumococos R con un extracto libre de células S.

¿Qué sustancia transmitía la propiedad de matar a los ratones de las bacterias S muertas a las bacterias R vivas? Esta pregunta es clave si consideramos a la transformación de R en S como un fenómeno de intercambio de información genética. Pero en ese entonces nadie imaginaba que las bacterias llevaran genes y por lo tanto la identificación de la sustancia responsable de tal transformación parecía no estar relacionada con el descubrimiento de la naturaleza de los mismos.
La naturaleza del principio transformante
El médico microbiólogo Oswald Avery quedó sorprendido por los resultados publicados por Griffith y aunque al principio no creía mucho en ellos, se propuso descubrir la sustancia responsable del fenómeno de transformación. Así fue como Oswald Avery, junto a sus colegas Colin MacLeod y Maclyn McCarty comenzaron a fraccionar el extracto de bacterias S libre de células donde, según Griffith, estaba el principio transformante. Encontraron que podían eliminar las proteínas, los lípidos, los polisacáridos y el ARN del extracto sin disminuir la propiedad del extracto de transformar a los neumococos R en S. Sin embargo, si purificaban el ADN presente en el extracto y lo incubaban con las bacterias R, éstas se transformaban en S. Era el ADN el principio transformante que hacía que los neumococos R se transformaran en S, es decir, era el ADN el que llevaba la información necesaria para que la cepa R fuera capaz de sintetizar una cápsula de polisacáridos idéntica a la que poseían las bacterias S.
| Oswald Avery | Colin McLeod | Maclyn McCarty |
 |  |  |
Cuando Avery, MacLeod y McCarty publicaron sus resultados en 1944, fueron muy pocos los que concluyeron que los genes estaban compuestos de ADN. En esa época era realmente difícil de imaginar que una molécula “monótona” compuesta sólo de cuatro bases nitrogenadas diferentes pudiera tener la suficiente variabilidad como para llevar toda la información genética que precisaban los seres vivos. Sin duda, eran las proteínas las candidatas para tal función, debido a su gran complejidad y múltiples formas. En este contexto, Avery, MacLeod y McCarty concluyeron, tímidamente, en su artículo:
“Si los resultados del presente estudio se confirman, entonces el ADN debe ser considerado como una molécula que posee especificidad biológica cuya base química aún no ha sido determinada”.
| Tratamiento realizado sobre el lisado | Resultado | Conclusión |
| Ninguno |  | El FT está presente en el lisado |
| Se añadió la enzima SIII,que degrada la cápsula de polisacárido |  | El FT no era el polisacárido que estaba presente en el lisado |
| Se añadieron al lisado anterior (con el polisacárido degradado) las enzimas proteolíticas tripsina y quimiotripsina |  | El FT no era una proteína. Debía ser un ácido nucleico (ARN o ADN) |
| Se extrajeron los ácidos nucleicos del lisado anterior y se añadió la enzima ARNasa (que degrada el ARN) |  | El FT no era el ARN |
| Al extracto de ácidos nucleicos anterior se le añadió la enzima ADNasa (que degrada el ADN) |  | FT = ADN |
Los bacteriófagos de Hershey y Chase

Llevó ocho años más para que la comunidad científica se convenciera de que el ADN era el material genético. Fue gracias al experimento que presentaron Al Hershey y Martha Chase en 1952, sobre la infección de bacteriófagos o fagos (virus que infectan bacterias). Los fagos están compuestos por una cabeza proteica que guarda en su interior ADN. Hershey y Chase vieron que durante la infección el ADN abandona la cabeza del fago y entra en la bacteria, dejando afuera la cabeza proteica. Es decir que el ADN lleva la información necesaria y suficiente para hacer más fagos hijos dentro de la bacteria. En otras palabras, el experimento indicaba que era el ADN el portador de la información genética del fago.
La conclusión de que el ADN portara la información genética para la continuidad de los fagos coincidía plenamente con la obtenida por Avery, MacLeod y McCarty, que indicaba que el ADN era el material genético de las bacterias. Sin embargo, y después de la desconfianza con que habían sido tomados los resultados sobre la transformación bacteriana, fue el experimento de los fagos el que disipó las dudas sobre la composición química de los genes.
| Población de fagos que ha crecido en un medio con35S |  | Proteína: radioactiva (en rojo)
DNA: no radioactivo (en negro)
|
| Población de fagos que ha crecido en un medio con32P |  | Proteína: no radioactiva (en negro)
DNA: radioactivo (en rojo)
|
| Cultivo de las bacterias con los fagos | Separación fagos-bacterias | Centrifugación: las células sedimentan y los fagos no |
 |  |  |
| Población de fagos que ha crecido en un medio con 35S |  |  |  |
| Población de fagos que ha crecido en un medio con 32P |  |  |  |
El ADN no es tan aburrido como parece
Como mencionamos anteriormente, para esa época prevalecía la idea de que el ADN era una molécula demasiado “aburrida” como para ser considerada portadora de la información genética. Esta idea fue desechada gracias al trabajo de Erwin Chargaff, quien analizó en detalle la composición de bases del ADN extraído de diferentes organismos. Llegó a la sorprendente conclusión de que las bases nitrogenadas no se encontraban en proporciones exactamente iguales en levaduras, bacterias, cerdos, cabras y humanos, sugiriendo que el ADN no debía ser tan monótono. Sin embargo, demostró que, independientemente del origen del ADN, la proporción de purinas era igual a la de pirimidinas, y que la proporción de adeninas era igual a la de timinas, y la de citosinas igual a la de guaninas. En su artículo, publicado en 1950, señaló:
“Los resultados ayudan a refutar la hipótesis del tetranucleótido. Es sin embargo notable, aunque no podemos decir que este hallazgo no sea más que accidental, que en todos los ADN examinados las proporciones entre el total de purinas y el total de pirimidinas, así como entre adenina y timina, y citosina y guanina, fueron próximos a 1”
Este resultado reflejaba por primera vez un aspecto estructural del ADN, indicaba que independientemente de la composición de A o de G en un ADN, siempre la concentración de A es igual a la de T y la de C igual a la de G. Sin embargo, en aquel momento Chargaff no sospechó las implicancias que podían tener estas reglas (denominadas más tarde “reglas de Chargaff”) en la elucidación de la estructura del ADN. Ni siquiera queda claro si Watson y Crick las tuvieron en cuenta para postular el modelo de la doble hélice.
Finalmente, la doble hélice

A comienzos de la década de 1950, tres grupos de investigadores trabajaban simultáneamente en la estructura del ADN. Uno de ellos, el de Linus Pauling y sus colegas, formuló un modelo equivocado, en el cual la molécula de ADN debía estar formada por una triple hélice.
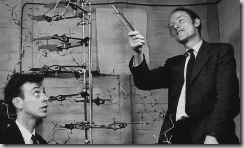
En el segundo equipo, liderado por Maurice Wilkins, trabajaba Rosalind Franklin. Ella fue la primera en obtener una excelente fotografía del ADN por difracción de rayos x, a partir de la cual podía deducirse la distribución y la distancia entre los átomos que formaban parte del ADN. Cuentan que mientras Wilkins y Franklin intentaban traducir sus datos en una estructura probable, la fotografía fue vista por James Watson y Francis Crick, el tercer equipo que estaba investigando la estructura del ADN. Watson y Crick tenían en mente una serie de posibles estructuras, pero al carecer de buenas fotografías no podían concluir sobre cuál era la correcta. La fotografía de Franklin fue clave en este sentido, y así Watson y Crick pudieron publicar en 1953, en el mismo número de la revista Natureen el que publicaron sus fotografías Wilkins y Franklin, la estructura de doble hélice del ADN. Watson y Crick inician su artículo original de esta manera:
“Deseamos sugerir una estructura para el ácido desoxirribonucleico (ADN). Esta estructura tiene características novedosas que son de considerable interés desde el punto de vista biológico”.
Según el modelo de Watson y Crick, el ADN debía ser una doble hélice y calcularon las distancias exactas que debía haber entre las cadenas y entre los átomos que las componen. Dedujeron que una pirimidina siempre se enfrentaba a una purina de la otra hebra y que estas bases se unían por puentes de hidrógeno.
La estructura de la doble hélice sin duda revolucionó la biología molecular. Más allá de haber sido validada por una infinidad de experimentos y técnicas, proporcionó respuestas a muchas preguntas que se tenían sobre la herencia. Predijo la autorreplicación del material genético y la idea de que la información genética estaba contenida en la secuencia de las bases.
En 1962 James Watson, Francis Crick y Maurice Wilkins recibieron el premio Nobel en medicina por el descubrimiento de la estructura del ADN. Rosalind Franklin había fallecido en 1958, a los 37 años de edad.